



青稞(Hordeum vulgare L. var. nudum Hook. f.)属禾本科大麦属,是栽培大麦的变种,俗称裸大麦,具有悠久的栽培历史[1]。作为青藏高原最早驯化的作物及最具特色的农作物,其不仅是藏族农耕文明的核心载体,更表现出突出的耐寒性、抗旱性、广适性及短生育期等特点[2]。该作物独特的营养组分“三高”(高纤维、高蛋白、高β-葡聚糖)与“二低”(低脂肪、低糖)结构特性,与现代饮食营养需求高度契合[3]。青稞籽粒富含β-葡聚糖和膳食纤维,具有较高的营养价值,可以加工为糌粑和青稞酒,兼具粮食、饲料及藏药原料功能[4-5]。高原青稞籽粒颜色丰富,包括紫色、蓝色、黑色和白色等,且海拔越高深色型大麦分布愈广[6-7]。众多学者[8
简单重复序列(SSR)分子标记是鉴定各品种遗传多样性的有效工具,其特点是稳定性高、检测方便、成本低且信息含量高[15]。SSR分子标记技术具有多维度应用价值,涵盖遗传多样性解析、种质资源鉴定、遗传连锁图谱构建、分子标记辅助选择育种(MAS)及群体遗传结构解析等研究领域[16
青稞作为西藏特色作物,利用SSR分子标记对青稞籽粒颜色进行的相关研究较少,缺乏针对籽粒颜色的特异性SSR标记,且基因型和表型关联分析不足。本研究采用22个SSR分子标记,对西藏多地域来源的327份青稞开展遗传多样性解析,系统分析其遗传背景差异,利用全基因组关联分析筛选鉴定籽粒颜色相关标记,以期为特色青稞品种改良及分子标记辅助育种提供理论依据。
1 材料与方法
1.1 试验材料
供试的327份青稞材料由西藏农牧大学高原作物种质资源保护与利用实验平台提供,其中昌都市32份、林芝市24份、日喀则市137份、山南市134份。
1.2 试验方法
1.2.1 籽粒颜色测定
于2023年10月下旬,将327份青稞亲本材料种植于西藏农牧大学植物科学学院实习农场(林芝市巴宜区),每份青稞材料种植3行,行长1.5 m,行距30.0 cm,在青稞成熟后,从各材料中选10株进行单株脱粒,观察各单株籽粒颜色,籽粒颜色表型见图1。
图1
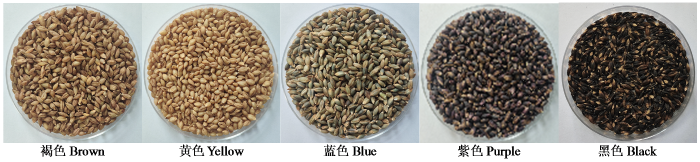
图1
不同粒色青稞籽粒颜色表型
Fig.1
Color phenotype of highland barley grains with different grain colors
1.2.2 基因组DNA提取
1.2.3 SSR标记检测及遗传多样性分析
挑选22个均匀分布于青稞1H-7H染色体上的分子标记(表1),对已提取的327份DNA进行PCR扩增。PCR扩增体系:2×PCR MasterMix 5.00 μL,模板DNA(50~100 ng/μL)1.00 μL,上下游引物各0.75 μL,最后加1.00 μL ddH2O。扩增程序:预变性96 ℃3 min;变性96 ℃ 15 s,退火55 ℃ 15 s,72 ℃延伸20 s,变性退火延伸3步设置40个循环;72 ℃延伸2 min,4 ℃冰箱保存。电泳步骤:取9 μL的PCR产物于8%的非变性聚丙烯酰胺凝胶中进行电泳,时间设置为2 h 30 min,电泳完成后使用硝酸银染色15 min后,于NaOH和甲醛溶液中进行显影,待到条带清晰后,拍照并编号保存胶图。以DNA Marker说明书的6个条带为参考,对胶图进行处理,记录各扩增条带的大小;使用NTsys-pc 2.1软件进行聚类分析并计算遗传相似系数(GS);采用Popgene 32软件统计等位基因频率及Shannon多样性指数;结合Babu等[31]的方法,使用Power Marker v3.25软件解析多态性信息含量(PIC)、等位基因数目与遗传距离参数,同时完成系统进化树构建;使用MEGA5.1软件和Evolview2工具对进化树进行处理。
表1 22对SSR引物的名称、所在染色体及序列
Table 1
| 引物名称Primer name | 染色体Chromosome | 正向序列Forward primer | 反向序列Reverse primer |
|---|---|---|---|
| Bmac0305 | 1H | TGTCCCACTGGTCATACTC | AGGATGTTGTGTGGGTGT |
| Bmac0399 | 1H | CGATGCTTTACTATGAGAGGT | GGGTCTGAAGCCTGAAC |
| HVAB | 1H | ATCTGTTTCAAAAATCCGATA | ATAGCCAGGGTATTAAAGGAC |
| Bmag0749 | 2H | CGGATTCTTGAGTAGTCTCTG | GATCTGTTTTTGTAGAACATGC |
| HVM54 | 2H | AACCCAGTAACACCTGTCCTG | AGTTCCCTGACCCGATGTC |
| HVM36 | 2H | TCCAGCCGACAATTTCTTG | AGTACTCCGACACCACGTCC |
| Bmag0006 | 3H | TTAAACCCCCCCCCTCTAG | TGCAGTTACTATCGCTGATTTAGC |
| HVM62 | 3H | TCGCGACCAGACGAGAAG | AGCTAGCCGACGACGCAC |
| HVM74 | 3H | AGGAAGTCATTGCGTGAG | TGATCAAGAATGATAACATGG |
| EBmac0701 | 4H | ATGATGAGAACTCTTCACCC | TGGCACTAAAGCAAAAGAC |
| EBmac0775 | 4H | GCTTCCTTCATAGACCCAT | ATATCATGCCAATGGTGTC |
| Bmgcc0002 | 4H | TAGCAAAGCCCATGGTACATC | TGACGAGGAGGGAGTAGTTCTC |
| HVM20 | 5H | CTCCACGAATCTCTGCACAA | CACCGCCTCCTCTTTCAC |
| AF043088A | 5H | CGACAAGGTGGAGGACTA | CTGAAGGCCTGAACTCAC |
| Bmag0401 | 5H | GGTTCCATAGGTATTAGCTACA | TCCTACTAAACAAACCATAGAAA |
| AB009307 | 6H | TTGTGCATATGTTGATGTGA | CGGTACCAATTCTTTGATTAC |
| AB009308 | 6H | ATGGAATCTTATCGCTGTTC | CGGCAGATTTGAGAACTATTA |
| Bmac0018 | 6H | GTCCTTTACGCATGAACCGT | ACATACGCCAGACTCGTGTG |
| AF022725B | 7H | AAACAAGACAGATTAGCTTGAA | TACATCATCGCATGAACTAAA |
| HVM60 | 7H | CAATGATGCGGTGAACTTTG | CCTCGGATCTATGGGTCCTT |
| Bmag0385 | 7H | CTCCACAGAGTCAGAGTTAGA | CTGACATTAGCTGACTCTCTATC |
| Bmac0286 | 7H | GTGGACGATTTGCTTGAT | ATTTATTCTGCACCCTGG |
1.2.4 关联分析
采用Structure 2.3.4软件分析群体遗传结构,使用DataFormater将胶图所得到的01矩阵转化为Structure所需的格式并导入,参数设置参考文献[32]。将参数Length of burnin period设为10 000,估计最佳群体组群数(K),设置1~10为取值范围,设置K值15次重复。将所得到的Results文件压缩,导入Harvester在线工具分析得出K和ΔK的矩阵,得出最佳K值。再使用Structure Harvester-master本地化工具,结合Evanno等[33]的统计方法计算得出所有K值文件,将最佳K值对应的2个文件放入CLUMPP v1.1.2软件的工作目录,运行后得出Q值。将Q值文件导入TBtools-II v2.225软件,使用Admixture Q Matrix Viz程序得出群体结构图。参考Earl等[34]的方法,使用SPAGeDi软件处理基因型数据,以Q参数为协变量,获得材料个体间亲缘关系的Kinship矩阵。
采用Tassel v2.1软件利用广义线性模型和混合线性模型2种方式进行关联分析。籽粒颜色性状采用二分类变量编码(目标表型=1,其他=0)。针对广义线性模型(GLM),设置群体结构Q矩阵作为协变量,通过SSR标记与表型性状的回归分析筛选显著性关联位点(P<0.01),并量化标记对表型变异的解释率(R2)[35]。混合线性模型(MLM)则利用Q矩阵与亲缘关系矩阵作为协变量,结合SSR标记和表型数据进行关联分析,确定关联位点,同时计算表型变异解释率。采用PCA+Kinship的方法,利用PCA校正群体分层,解释主成分和表型的相关性,作图时使用PC1和PC2的值,置信区间设置为95%,可视化群体结构。
1.2.5 相关性分析
使用Origin 2021的Correlation Plot插件绘制热图,独热编码方式编辑籽粒颜色数据,保留类别独立性,利用Spearman相关系数进行计算分析,热图中标注相关性系数。并制作箱线图来可视化不同颜色类别对应的海拔分布差异。
2 结果与分析
2.1 SSR标记分析
基于22个SSR标记进行群体遗传学分析,结果显示,327份青稞种质中共检测到76个等位变异,各标记位点的等位基因数在2~6,平均等位基因数达3.45(表2)。标记Bmag0401检测到6个等位变异;标记Bmac0305、HVAB、HVM62和Bmac0018检测到的等位变异最少,为2个。Shannon指数变化范围为0.3782~1.0632,平均值为0.6941,标记EBmac0775的Shannon指数最低,为0.3782,标记Bmac0305的Shannon指数最高,为1.0632。遗传多样性分析显示,基因多样性指数在0.3405~ 0.8012,平均为0.5760,PIC值在0.3297~0.7974,平均为0.5531,2个多样性核心指标一致。该结果表明327份青稞种质存在丰富的遗传变异,其中Bmag0401与HVM36位点表现出最高多态性,PIC值分别为0.7974和0.7340,基因多样性指数分别为0.8012和0.7541,可作为遗传多样性评估的核心标记组。
表2 22对SSR引物在327份青稞材料中的多态性检测
Table 2
| 标记 Marker | 染色体 Chromosome | 位置 Position | 等位基因数 Number of alleles | 基因多样性指数 Gene diversity index | Shannon指数 Shannon’s index | 多态性信息含量 PIC |
|---|---|---|---|---|---|---|
| Bmac0305 | 1H | 45 | 2 | 0.4325 | 1.0632 | 0.3417 |
| Bmac0399 | 1H | 125 | 4 | 0.6844 | 0.5895 | 0.6408 |
| HVAB | 1H | 76 | 2 | 0.3515 | 0.6897 | 0.3304 |
| Bmag0749 | 2H | 85 | 3 | 0.4952 | 0.4074 | 0.4781 |
| HVM54 | 2H | 90 | 3 | 0.4745 | 0.5151 | 0.4527 |
| HVM36 | 2H | 108 | 5 | 0.7541 | 0.9635 | 0.7340 |
| Bmag0006 | 3H | 34 | 3 | 0.5523 | 1.0286 | 0.5322 |
| HVM62 | 3H | 84 | 2 | 0.3405 | 0.8251 | 0.3297 |
| HVM74 | 3H | 122 | 3 | 0.4985 | 0.4533 | 0.4778 |
| EBmac0701 | 4H | 24 | 4 | 0.6943 | 0.6939 | 0.6764 |
| EBmac0775 | 4H | 80 | 3 | 0.5776 | 0.3782 | 0.5640 |
| Bmgcc0002 | 4H | 130 | 5 | 0.7053 | 0.9813 | 0.6875 |
| HVM20 | 5H | 34 | 4 | 0.6354 | 0.3858 | 0.6104 |
| AF043088A | 5H | 76 | 3 | 0.5784 | 0.7156 | 0.5530 |
| Bmag0401 | 5H | 115 | 6 | 0.8012 | 0.7133 | 0.7974 |
| AB009307 | 6H | 23 | 5 | 0.7032 | 0.7617 | 0.6876 |
| AB009308 | 6H | 36 | 4 | 0.5998 | 0.5296 | 0.5830 |
| Bmac0018 | 6H | 72 | 2 | 0.3769 | 0.7539 | 0.3554 |
| AF022725B | 7H | 50 | 4 | 0.7123 | 0.5888 | 0.6879 |
| HVM60 | 7H | 154 | 3 | 0.5683 | 1.0539 | 0.5473 |
| Bmag0385 | 7H | 120 | 3 | 0.5749 | 0.5403 | 0.5579 |
| Bmac0286 | 7H | 163 | 3 | 0.5627 | 0.6404 | 0.5425 |
2.2 遗传相似系数及聚类分析
基于22个SSR标记的遗传相似性分析表明,327份青稞亲本的GS在0.5983~1.0000,平均为0.7546。聚类分析结果(图2)显示SSR分子标记技术有效实现了西藏多地域青稞种质的遗传鉴别。在相似性为0.6215时,群体被划分为3个遗传类群,类群Ⅰ、类群Ⅱ和类群Ⅲ分别有58、84和185份,该分类模式与群体遗传结构解析结果高度吻合。依据上述数据可得,GS值较大的材料产地基本相同,产地不同的材料GS值较小,聚类结果与材料的地理来源特征基本符合。由此可得,GS值较大的材料,亲缘关系更近,材料间的遗传距离较小,可能为来自同一环境的品种,不适合作为杂交组合;GS较低的种质材料表明其遗传分化程度较高,亲缘关系较远,具有显著的遗传异质性,可以考虑作为杂交组合进行配置。
图2
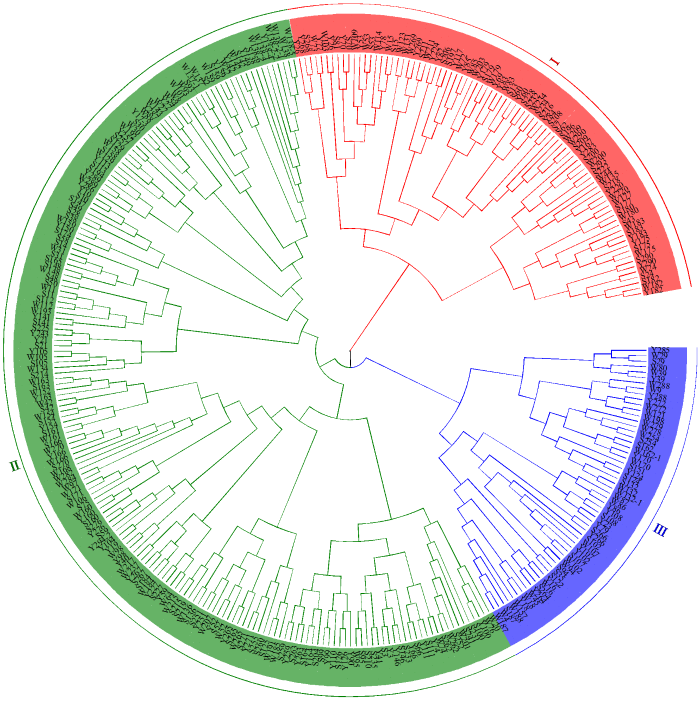
图2
基于22个SSR标记数据的327份青稞材料聚类分析
Fig.2
Cluster analysis of 327 highland barley materials based on 22 SSR Markers
2.3 群体遗传结构
图3
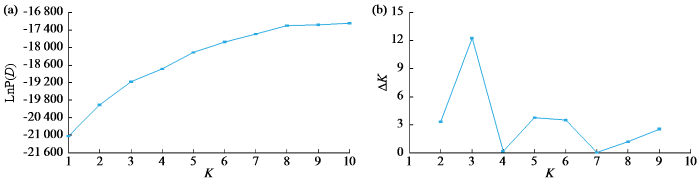
图4
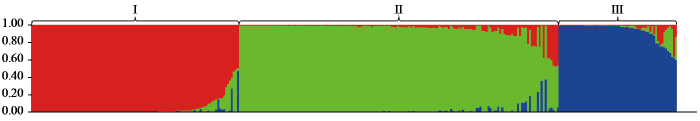
图4
327份青稞材料的群体遗传结构图
Fig.4
Population genetic structure diagram of 327 highland barley materials
2.4 SSR标记与籽粒颜色的关联分析
基于群体遗传结构解析及亲缘关系矩阵,GLM模型分析以群体结构Q矩阵作为固定效应协变量,通过SSR标记与籽粒颜色表型的关联分析筛选显著性关联位点,并量化其表型变异解释率。而对于MLM模型,则将Q矩阵与亲缘关系K矩阵结合作为协变量,开展遗传关联分析。GLM结果(表3)表明,在22个标记当中,有8个标记与粒色极显著相关。各标记对表型变异的解释率在12.07%~46.32%,Bmac0305标记解释率最大,标记AB009307对籽粒颜色性状的解释率最小。MLM结果显示,检测的22个标记中有4个与粒色性状极显著相关,各标记对表型变异的解释率为13.23%~28.07%,标记HVAB对籽粒颜色的解释率最大,标记HVM60对籽粒颜色的解释率最小。与籽粒颜色性状相关的SSR标记,MLM检测比GLM分析结果少了4个,且解释率降低。GLM简单高效,敏感性较高,但特异性较低,对复杂群体结构的适应性差;MLM关联信号更保守,控制群体结构和个体间的遗传相关性,显著降低假阳性,适合大规模群体或存在显著亲缘关系的样本,二者结合分析更为准确。分析结果得出,控制不同颜色的基因可能对应不同的染色体,对高海拔地区较为常见蓝色、紫色和黑色籽粒性状进行单独分析,控制蓝粒的基因在4H(Bmgcc0002)、6H(AB009307)和7H(HVM60、Bmac0286)染色体上,控制紫粒的基因在1H(Bmac0305、HVAB)、2H(Bmag0749、HVM54)和4H(Bmgcc0002)染色体上,控制黑粒的基因在1H(Bmac0305、HVAB)、2H(HVM54、Bmag0749)、3H(HVM62)和5H(HVM20)染色体上。HVM60标记通过2种模型均能检测到与蓝色性状关联;HVM54标记在2种模型中对紫色和黑色的解释率均较大,作为紫粒和黑粒连锁标记值得关注。对其进行主成分分析(图5),研究各青稞亲本材料的主成分分布情况发现,不同SSR标记的材料没有形成明显的分布差异,而是接近结团簇拥在一起,群体结构分化不明显。
表3 关联标记及其对表型变异的解释率
Table 3
| 标记 Marker | 染色体 Chromosome | 解释率 Explained variance rate | 籽粒颜色 Grain color | |
|---|---|---|---|---|
| GLM | MLM | |||
| Bmac0305 | 1H | 46.32 | 紫色、黑色 | |
| Bmac0399 | 1H | |||
| HVAB | 1H | 28.07 | 紫色、黑色 | |
| Bmag0749 | 2H | 16.41 | 紫色、黑色 | |
| HVM54 | 2H | 22.52 | 20.24 | 紫色、黑色 |
| HVM36 | 2H | |||
| Bmag0006 | 3H | |||
| HVM62 | 3H | 24.21 | 黑色 | |
| HVM74 | 3H | |||
| EBmac0701 | 4H | |||
| EBmac0775 | 4H | |||
| Bmgcc0002 | 4H | 32.04 | 蓝色、紫色 | |
| HVM20 | 5H | 43.46 | 黑色 | |
| AF043088A | 5H | |||
| Bmag0401 | 5H | |||
| AB009307 | 6H | 12.07 | 蓝色 | |
| AB009308 | 6H | |||
| Bmac0018 | 6H | |||
| AF022725B | 7H | |||
| HVM60 | 7H | 17.87 | 13.23 | 蓝色 |
| Bmag0385 | 7H | |||
| Bmac0286 | 7H | 35.39 | 蓝色 | |
图5
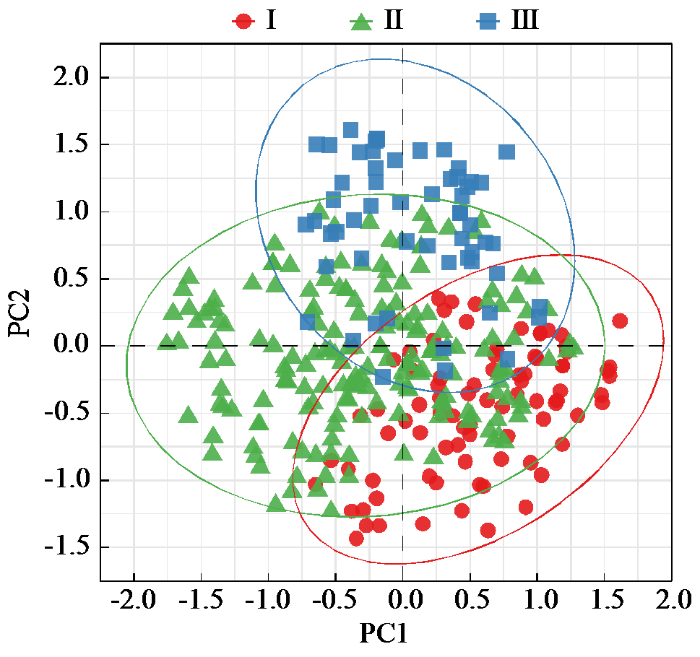
图5
327份青稞材料的SSR标记信息主成分分析
Fig.5
PCA analysis of SSR marker information from 327 highland barley materials
2.5 海拔与籽粒颜色的相关性分析
海拔与籽粒颜色的相关性分析(图6)表明,海拔与褐色、黄色的相关系数均为负值且不显著,说明海拔与浅色籽粒相关性不显著;海拔与蓝色、紫色和黑色相关性系数分别为0.3732、0.3406和0.4030,呈显著正相关,籽粒颜色会随着海拔的升高而加深。使用分组分析,直接比较不同颜色对应的海拔差异(图7),箱线图通过第1个四分位数(Q1)、中位数、第3个四分位数(Q3)和最大值呈现数据的中枢趋势、离散程度及潜在异常值。褐色的4个指标分别为3551.0、3815.0、3939.5和4475.0 m;黄色分别为3339.0、3702.0、3932.0和4100.0 m;蓝色分别为4156.0、4242.0、4305.0和4590.0 m;紫色分别为4297.0、4340.5、4409.0和4497.0 m;黑色分别为4460.0、4711.0、4776.0和4890.0 m。褐色、蓝色和紫色存在异常值,如褐色籽粒材料出现在海拔2634.0、2639.0和2825.0 m的地区。
图6
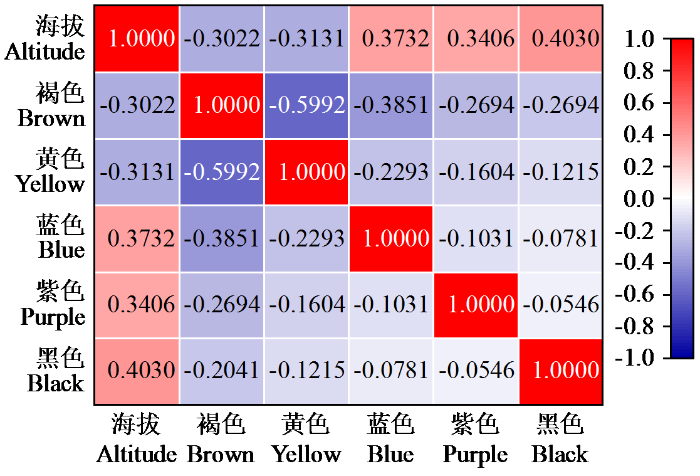
图6
327份青稞材料的海拔与籽粒颜色相关性热图
Fig.6
Heatmap of correlation between altitude and grain color of 327 highland barley materials
图7
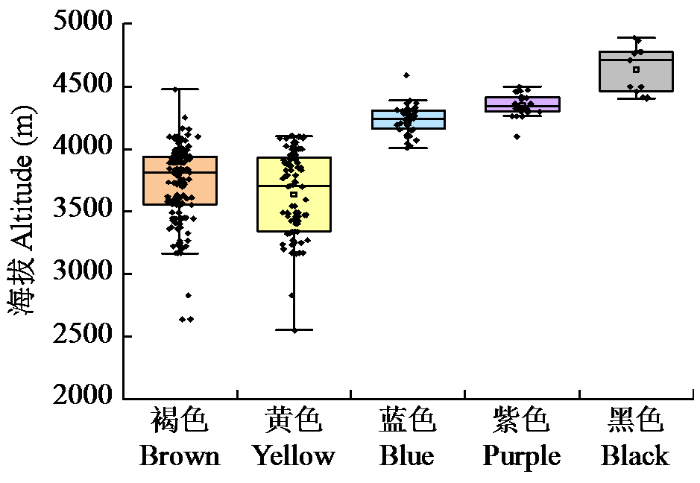
图7
327份青稞材料的海拔与籽粒颜色箱线图
Fig.7
Boxplot between altitude and grain color of 327 highland barley materials
3 讨论
种质资源创新是作物遗传改良的核心物质基础,优异种质资源的发掘与创新是育种突破的关键前提[36]。当前,基于SSR分子标记技术的大麦(青稞)遗传多样性系统分析已形成完整方法体系,如赖勇等[37]基于SSR分子标记构建的遗传距离矩阵,采用双模型验证策略开展关联分析,其中9个位点与株高、芒长、穗长及穗粒数多性状协同调控相关,6个位点特异性调控株高与芒长性状,这些显著关联位点主要分布于1~4H及7H染色体区域。由于作物在进化过程中必然会存在许多基因重组事件,导致出现复杂的群体结构,因此在进行关联分析时需要考虑群体结构的影响。本研究采用群体遗传学分析方法进行群体遗传结构解析,明确最佳的遗传聚类参数(K=3),将327份青稞材料划分为3个遗传亚群,其样本量分别为58、84和185份,结果说明群体结构相对简单,存在伪关联的概率很小,对于SSR标记与性状的关联分析较为有利。胡倩文等[38]基于224对SSR标记对137份大麦种质开展遗传多样性研究,利用GLM和MLM 2种模型对多环境试验点下大麦的穗粒数、小穗密度、小穗数和穗长等进行关联分析,鉴定出能在2个环境同时检测到的标记位点。刘志敏等[39]构建了包含96份大麦种质的核心种质库,采用SSR分子标记技术开展遗传多样性研究,解析遗传结构特征,通过扫描107对引物并进行群体遗传学分析,发现现代大麦育种存在显著的遗传瓶颈效应,该研究提出建立跨生态区种质资源交流机制,建议优先整合遗传多样性热点区域的种质材料,以拓展育种材料的遗传变异频谱。张元元等[40]以102份青稞材料为基础,使用92个SSR标记分析其遗传多样性和群体遗传结构,发现了与千粒重相关的标记GBM1238。孟亚雄等[35]通过构建108份青藏高原青稞种质资源的关联分析体系,采用92个SSR标记进行遗传距离矩阵计算与多态性评估,通过比较广义线性模型和混合线性模型的统计效力,针对穗粒数、株高、穗长及分蘖数量等重要性状,分别检测到12个(GLM)和8个(MLM)显著性关联位点。王国平等[41]针对39份青稞核心种质,采用27个高多态性SSR标记开展遗传结构解析。并结合株高、小穗密度和分蘖数等农艺性状进行关联分析,筛选出具有互补遗传特征的优异亲本组合。王晋[42]构建了包含113份大麦核心种质资源的遗传评估体系,基于86对SSR标记进行全基因组多样性解析,进一步进行群体遗传结构解析,筛选出高信息量标记并开展农艺性状全基因组关联研究,该研究证实,基于遗传多样性评估框架的群体结构分层策略,可使关联分析结果的遗传解释力提升,为作物复杂性状的分子解析提供了方法论范式,在其他作物上的应用亦是如此。汤翠凤等[43]以来自云南边境3个地区的376份稻种为材料,基于27对分子标记研究稻种的遗传多样性,找出了与表型性状关联性较密切,且能解释穗长、穗实粒数、穗总粒数和千粒重等性状变化10%以上的标记,并筛选出了具有亲本潜力的优异资源。
本研究通过SSR标记对控制不同籽粒颜色形成的基因进行研究,粗略分析得出控制青稞蓝粒的基因可能在4H、6H和7H染色体上,控制紫粒的基因可能在1H、2H和4H染色体上,控制黑粒的基因可能在1H、2H、3H和5H染色体上,与上述研究基本相同,后续需要利用更多的标记进行鉴定。对于大麦粒色的相关研究,国内外的报道均较多,关于青稞控制粒色的基因定位,国内外也已进行了较多研究,Xu等[44]通过图位克隆技术将蓝粒青稞花青素合成关键基因HvGST精细定位于7H染色体。Jia等[8]以黑色青稞和紫色青稞为材料,对其F2和F3群体进行分析,采用BSA-seq技术鉴定出黑色籽粒主效QTL定位于1H染色体上,紫色籽粒调控基因在1H与2H染色体呈多效性分布。Shoeva等[9]利用紫黑色青稞近等基因系(NILs),最终将紫色籽粒基因HvPLP定位到1H染色体上,而黑色籽粒基因HvBLP定位于2H染色体。传统分子标记技术构建的遗传图谱存在分辨率有限和候选基因筛选范围宽泛等局限,可以通过靶向测序(如特异性位点扩增测序)与多组学技术,通过全基因组关联分析与共表达网络构建,系统解析青稞籽粒色泽形成的关键调控通路及其核心基因簇。
4 结论
22对SSR标记共检测到76个等位变异,各标记位点的等位基因数在2~6,平均等位基因数为3.45。327份材料分为3个大类群,类群Ⅰ、类群Ⅱ和类群Ⅲ分别有58、84和185份。控制蓝粒的基因在4H(Bmgcc0002)、6H(AB009307)和7H(HVM60、Bmac0286)染色体上,控制紫粒的基因在1H(Bmac0305、HVAB)、2H(Bmag0749、HVM54)和4H(Bmgcc0002)染色体上,控制黑粒的基因在1H(Bmac0305、HVAB)、2H(HVM54、Bmag0749)、3H(HVM62)和5H(HVM20)染色体上。HVM60标记通过2种模型均能检测到与蓝粒性状关联,HVM54标记在2种模型中对紫粒和黑粒解释率均较大,这2个标记值得关注。
参考文献
Genetic mapping and molecular marker development for the gene Pre2 controlling purple grains in barley
DOI:10.1007/s10681-015-1593-y URL [本文引用: 2]
Regulation of the flavonoid biosynthesis pathway genes in purple and black grains of Hordeum vulgare
DOI:10.1371/journal.pone.0163782 URL [本文引用: 1]
Toward identification of black lemma and pericarp gene Blp1 in barley combining bulked segregant analysis and specific-locus amplified fragment sequencing
DOI:10.3389/fpls.2017.01414 URL
Development of gene-based SSR markers in rice bean (Vigna umbellata L.) based on transcriptome data
DOI:10.1371/journal.pone.0151040 URL [本文引用: 1]
SSR标记在水稻种质研究中的应用进展
基于SSR标记淡黄金花茶的遗传多样性和遗传结构研究
Population structure and long-range linkage disequilibrium in a durum wheat elite collection
DOI:10.1007/s11032-004-7012-z URL [本文引用: 1]
Structure of linkage disequilibrium in plants
DOI:10.1146/arplant.2003.54.issue-1 URL [本文引用: 1]
Association analysis of agronomic and quality traits with SSR markers in Glycine max and Glycine soja in China: I. Population structure and associated markers
Genome-wide association study of flowering time and grain yield traits in a worldwide collection of rice germplasm
Genome-wide association study for grain yield and related traits in an elite spring wheat population grown in temperate irrigated environments
DOI:10.1007/s00122-014-2435-3
PMID:25490985
[本文引用: 1]

Through genome-wide association study, loci for grain yield and yield components were identified in chromosomes 5A and 6A in spring wheat (Triticum aestivum). Genome-wide association study (GWAS) was conducted for grain yield (YLD) and yield components on a wheat association mapping initiative (WAMI) population of 287 elite, spring wheat lines grown under temperate irrigated high-yield potential condition in Ciudad Obregón, Mexico, during four crop cycles (from 2009-2010 to 2012-2013). The population was genotyped with high-density Illumina iSelect 90K single nucleotide polymorphisms (SNPs) assay. An analysis of traits across subpopulations indicated that lines with 1B/1R translocation had higher YLD, grain weight, and taller plants than lines without the translocation. GWAS using 18,704 SNPs identified 31 loci that explained 5-14 % of the variation in individual traits. We identified SNPs in chromosome 5A and 6A that were significantly associated with yield and yield components. Four loci were detected for YLD in chromosomes 3B, 5A, 5B, and 6A and the locus in 5A explained 5 % of the variation for grain number/m(2). The locus for YLD in chromosome 6A also explained 6 % of the variation in grain weight. Loci significantly associated with maturity were identified in chromosomes 2B, 3B, 4B, 4D, and 6A and for plant height in 1A and 6A. Loci were also detected for canopy temperature at grain filling (2D, 4D, 6A), chlorophyll index at grain filling (3B and 6A), biomass (3D and 6A) and harvest index (1D, 1B, and 3B) that explained 5-10 % variation. These markers will be further validated.
Genomewide association mapping of frost tolerance in barley ( Hordeum vulgare L.)
DOI:10.1186/1471-2164-14-424
[本文引用: 1]
Frost tolerance is a key trait with economic and agronomic importance in barley because it is a major component of winter hardiness, and therefore limits the geographical distribution of the crop and the effective transfer of quality traits between spring and winter crop types. Three main frost tolerance QTL (Fr-H1, Fr-H2 and Fr-H3) have been identified from bi-parental genetic mapping but it can be argued that those mapping populations only capture a portion of the genetic diversity of the species. A genetically broad dataset consisting of 184 genotypes, representative of the barley gene pool cultivated in the Mediterranean basin over an extended time period, was genotyped with 1536 SNP markers. Frost tolerance phenotype scores were collected from two trial sites, Foradada (Spain) and Fiorenzuola (Italy) and combined with the genotypic data in genome wide association analyses (GWAS) using Eigenstrat and kinship approaches to account for population structure.
Molecular diversity and association mapping of quantitative traits in Tibetan wild and worldwide originated barley (Hordeum vulgare L.) germplasm
DOI:10.1007/s10681-010-0260-6 URL [本文引用: 1]
A rapid method for extraction of cotton (Gossypium spp.) genomic DNA suitable for RFLP or PCR analysis
DOI:10.1007/BF02670470 URL [本文引用: 1]
Modification of a CTAB DNA extraction protocol for plants containing high polysaccharide and polyphenol components
DOI:10.1007/BF02772108 URL [本文引用: 1]
Molecular and phenotypic characterization of 149 finger millet accessions using microsatellite and agro-morphological markers
Proceedings of the National Academy of Sciences,
大麦遗传多样性及连锁不平衡分析
DOI:10.3724/SP.J.1006.2013.02154
[本文引用: 1]
为了合理评价引进种质资源,为大麦基因发掘及育种组合配置提供依据,选用分布于全基因组的64个SSR标记,对221份大麦材料进行了基因型分析。共检测到192个等位变异,变幅为2~7个;基因频率变异范围为0.0090~0.9729,平均0.3333;全部位点的基因多样性变化范围在0.0528~0.7807,平均0.4813;多态性信息含量(PIC)变异范围在0.0514~0.7464,平均0.4113。供试材料间遗传相似系数变幅为0.4844~0.9792,平均0.7023。221份材料被划分成两大群7个亚群,国内地方品种与1份北京品种为一大群,国内育种品种与所有国外引进品种为另一群。遗传结构分析与聚类结果基本一致,两大类群间的遗传距离为0.3358,且第二大群多样性比第一大群丰富。2016个SSR位点成对组合中,不论共线性组合还是非共线性组合,都存在一定程度的连锁不平衡(LD)。D′统计概率(P<0.01)支持的LD成对位点830个,占全部位点组合的41.2%,D′平均值为0.4,整体LD水平较高。栽培品种的LD水平高于地方品种,且现代遗传改良的目标性状集中于2H、4H、6H和7H染色体。
Detecting the number of clusters of individuals using the software structure: a simulation study
DOI:10.1111/j.1365-294X.2005.02553.x
PMID:15969739
[本文引用: 1]
The identification of genetically homogeneous groups of individuals is a long standing issue in population genetics. A recent Bayesian algorithm implemented in the software STRUCTURE allows the identification of such groups. However, the ability of this algorithm to detect the true number of clusters (K) in a sample of individuals when patterns of dispersal among populations are not homogeneous has not been tested. The goal of this study is to carry out such tests, using various dispersal scenarios from data generated with an individual-based model. We found that in most cases the estimated 'log probability of data' does not provide a correct estimation of the number of clusters, K. However, using an ad hoc statistic DeltaK based on the rate of change in the log probability of data between successive K values, we found that STRUCTURE accurately detects the uppermost hierarchical level of structure for the scenarios we tested. As might be expected, the results are sensitive to the type of genetic marker used (AFLP vs. microsatellite), the number of loci scored, the number of populations sampled, and the number of individuals typed in each sample.
STRUCTURE HARVESTER: a website and program for visualizing structure output and implementing the Evanno method
DOI:10.1007/s12686-011-9548-7 URL [本文引用: 1]
不同国家甜菜种质资源遗传多样性研究
DOI:10.13430/j.cnki.jpgr.2018.01.009
[本文引用: 1]
通过对来自12个国家的247份甜菜种质资源遗的16个描述性状及10个数量性状进行了遗传多样性进行了分析, 结果表明:16个描述型性状均表现出不同程度的遗传差异,多样性指数在0.4806与1.5230之间,平均值为0.8608,其中根肉色多样性指数最小,生长势的多样性指数最大;10个数值型性状的变异系数在1.29%~7.08%之间,平均为3.57%,a-N含量最小,叶片数最大;。对不同国家甜菜种质资源的表型遗传差异进行了分析遗传差异大小为中国>荷兰>美国>瑞典>日本>德国>匈牙利>波兰>俄罗斯>丹麦>法国>比利时。应用SPSS22.0对247份材料表型进行了的聚类分析表明,在阈值为7.5时把材料分为5类,每个国家在五个分类中所占的比例均不同。鉴定筛选出的15份丰产资源和15份高糖资源,可在育种中做为品种产量改良及提高含糖率的亲本材料。
大麦4个穗部性状的关联分析
DOI:10.3969/j.issn.1004-1524.2020.11.03
[本文引用: 1]
穗部性状是大麦产量和品质的重要决定因素,良好的穗部结构应有一定的穗长基础、适合的小穗密度和每穗小穗数。以137份来源广泛的大麦材料为关联群体,利用224对SSR标记获取群体基因型,在2个环境试点下对穗粒数、小穗密度、小穗数、穗长进行性状观察,利用一般线性模型(GLM)和混合线性模型(MLM)两种模型进行4个穗部性状与SSR标记的关联分析。供试大麦群体的4个穗部性状差异显著,穗粒数与小穗数、穗长与小穗密度显著相关。224对SSR标记共检测出479个等位变异,平均有效等位基因数、Shannon's指数和PIC分别为1.765、0.612和0.327。供试材料的遗传相似系数(GS)变化范围为0.486~0.891,并在GS值为0.580时,将材料分为2个类群。群体结构分析也将供试材料分为2个亚群。GLM分析显示,与穗粒数、小穗密度、小穗数、穗长相关联的标记位点数量分别有33、13、34、6,这些标记遍布大麦7条染色体,单个标记对表型变异的解释率为8.65%~50.08%(P<0.001);MLM分析显示,与上述4个性状相关联的标记位点数量分别为4、3、4、1,这些标记位于大麦1H、2H和4H染色体,单个标记对表型变异的解释率为3.12%~16.95%(P<0.001)。Ind1003、Ind2030、Ind2055、Ind4012这4个标记在2个环境中都能被2种模型检测到,且同时与穗粒数和小穗数相关联。
青稞遗传多样性及其农艺性状与SSR标记的关联分析
DOI:10.3969/j.issn.1004-1524.20231050
[本文引用: 1]
为了解不同地区青稞材料的遗传多样性,挖掘与农艺性状相关的标记,该研究利用92对SSR标记分析来自甘肃和西藏不同地区的102份青稞材料的遗传多样性和群体遗传结构,并利用Tassel 2.1软件的GLM模型进行SSR标记与农艺性状的关联分析。结果表明,92对标记共扫描鉴定出739个等位基因,基因多样性指数变幅为0.106~0.913,多态性信息含量变幅为0.103~0.907;遗传相似系数变幅为0.680~0.960,聚类分析将这些青稞材料分为2个亚群,具有相同亲本或亲缘关系相近的材料聚在一起;群体遗传结构分析把青稞材料分为5个亚群;鉴定出33个标记与9个农艺性状在P<0.01水平上极显著关联,与千粒重相关的标记有10个,其中标记GBM1238较为稳定,这些标记的表型变异解释率为8.95%~35.02%。综上,该研究大部分供试青稞材料的亲缘关系相近,可以引进不同的青稞遗传资源来丰富遗传背景。
HvGST plays a key role in anthocyanin accumulation in colored barley
DOI:10.1111/tpj.v113.1 URL [本文引用: 1]
青藏高原裸大麦种质资源形态多样性分析
DOI:10.3969/j.issn.1004-1524.2019.07.02
[本文引用: 1]
为了解青藏高原裸大麦区种质资源的遗传多样性,提高该地区裸大麦种质资源利用效率,对86份青藏裸大麦种质资源的形态多样性进行鉴定。结果表明:该地区裸大麦种质资源遗传多样性丰富,主穗长的形态多样性指数最高,为2.05;株型的遗传多样性指数最低,为0.47。总体表现为数量性状形态多样性指数大于质量性状。基于形态性状的聚类分析把86份材料聚为4类,第Ⅰ类是二棱种质,为高秆大穗大粒型,第Ⅱ类种质为矮秆多粒长穗型,第Ⅲ类种质为短穗型,第Ⅳ类种质为高秆多粒型。采用主成分分析进行种质评价,提取前7个主成分即可概括全部性状的大部分生物学信息,筛选出适合江苏地区生长的优良种质资源,为裸大麦种质资源的收集和利用提供理论依据。


