


基因的差异导致品种形态差异和特征特性的不同。目前区别水稻品种较为有效、快捷的方法是利用DNA分子标记鉴别不同品种基因型的差异[3,4]。Moore等在1991年创立了SSR标记技术,在水稻基因组中,平均每157kb才有一个SSR位点[5],因此SSR分子标记密度还远远达不到要求。另外,它与水稻品种农艺性状关联性较差,难以区分近等基因系或功能代换系[6]。InDel(Insertion-Deletion)标记即插入缺失标记[7,8,9],指的是两种基因型在全基因组中的差异,相对于其中一个基因型而言,另一个基因型的基因组中有一定数量的核苷酸插入或缺失。根据基因组中插入缺失位点,设计一些特异扩增识别这些插入缺失位点的PCR引物,这就是InDel标记,是一类共显性标记[10,11]。InDel在基因组中分布广泛、密度大、数目多。就分布密度而言,平均每953bp就有一个InDel位点,仅次于每268bp就有一个SNP位点,但远高于SSR标记位点[12,13]。SNP标记在理论上潜力很大,但由于目前检测方法和成本的限制,并没有进行广泛的应用[14,15]。InDel标记准确性高、变异稳定,避免了由于特异性和复杂性导致的后续分析模糊[16,17]。本研究从InDel标记的特点出发,下载并设计大量有关InDel标记引物,对水稻材料进行分析,根据其在种内和种间都有多态性、通用性较强的特点来筛选功能性InDel位点,为实现InDel标记在生物的遗传多样性分析、品种鉴定、亲子分析等方面的广泛应用打下基础。
1 材料与方法
试验于2015年7月-2018年9月进行,室内试验于安徽省农业科学院水稻研究所生物技术实验室完成,田间种植在合肥岗集试验基地完成。
1.1 试验材料
收集长江中下游地区主推水稻品种245个(表1),其中,常规种/亲本157个,两系杂交种38个,三系杂交种50个。对部分纯度存在疑问的品种进行田间种植去杂,统一编号后备用。
表1 供试水稻品种的名称、类型及类群
Table 1
| 编号 Number | 品种 Variety | 类型 Type | 类群 Group | 编号 Number | 品种 Variety | 类型 Type | 类群 Group | 编号 Number | 品种 Variety | 类型 Type | 类群 Group |
|---|---|---|---|---|---|---|---|---|---|---|---|
| 1 | 绍糯9714 | 常规种/亲本 | ⅡA | 50 | 恢52 | 常规种/亲本 | ⅠA | 99 | 沪恢6号 | 常规种/亲本 | ⅠA |
| 2 | 高科1号 | 常规种/亲本 | ⅠA | 51 | 密阳46 | 常规种/亲本 | ⅠB | 100 | cp120 | 常规种/亲本 | ⅠA |
| 3 | 泸香658 | 常规种/亲本 | ⅠA | 52 | 9311 | 常规种/亲本 | ⅠA | 101 | 恢527 | 常规种/亲本 | ⅠA |
| 4 | 德香4103 | 常规种/亲本 | ⅠA | 53 | RH003 | 常规种/亲本 | ⅠA | 102 | 898 | 常规种/亲本 | ⅠA |
| 5 | 浙农34 | 常规种/亲本 | ⅠA | 54 | ZH128 | 常规种/亲本 | ⅠA | 103 | 盐559 | 常规种/亲本 | ⅠA |
| 6 | 中嘉早17 | 常规种/亲本 | ⅠA | 55 | 红98 | 常规种/亲本 | ⅠA | 104 | 零57 | 常规种/亲本 | ⅠA |
| 7 | 嘉兴8号 | 常规种/亲本 | ⅠA | 56 | R6547 | 常规种/亲本 | ⅠA | 105 | 明63 | 常规种/亲本 | ⅠA |
| 8 | 镇稻15 | 常规种/亲本 | ⅠA | 57 | R118 | 常规种/亲本 | ⅠA | 106 | IR50迟穗 | 常规种/亲本 | ⅠA |
| 9 | 淮稻12 | 常规种/亲本 | ⅠA | 58 | 安香2号 | 常规种/亲本 | ⅠA | 107 | 杨6无芒 | 常规种/亲本 | ⅠA |
| 10 | 皖稻68 | 常规种/亲本 | ⅠA | 59 | 川香6号 | 常规种/亲本 | ⅠA | 108 | 特青 | 常规种/亲本 | ⅡA |
| 11 | 黄糯2号 | 常规种/亲本 | ⅠA | 60 | 明恢100 | 常规种/亲本 | ⅠA | 109 | 成恢448 | 常规种/亲本 | ⅠA |
| 12 | 皖垦糯1号 | 常规种/亲本 | ⅠA | 61 | 明恢77 | 常规种/亲本 | ⅠA | 110 | 镇江084 | 常规种/亲本 | ⅠA |
| 13 | 中优838 | 常规种/亲本 | ⅠA | 62 | 黥香恢788 | 常规种/亲本 | ⅠA | 111 | 培矮64 | 常规种/亲本 | ⅠA |
| 14 | 皖稻197 | 常规种/亲本 | ⅠA | 63 | 测64 | 常规种/亲本 | ⅠA | 112 | Li7954 | 常规种/亲本 | ⅠA |
| 15 | 嘉育253 | 常规种/亲本 | ⅠA | 64 | 创丰占 | 常规种/亲本 | ⅠA | 113 | 万恢88 | 常规种/亲本 | ⅠA |
| 16 | 新强8号 | 常规种/亲本 | ⅠA | 65 | 奉化占 | 常规种/亲本 | ⅠA | 114 | R602 | 常规种/亲本 | ⅠA |
| 17 | 五山丝苗 | 常规种/亲本 | ⅠA | 66 | 丰美占 | 常规种/亲本 | ⅠA | 115 | Liu3149 | 常规种/亲本 | ⅠA |
| 18 | 粳糯4921 | 常规种/亲本 | ⅠA | 67 | 广香籼 | 常规种/亲本 | ⅠA | 116 | 明恢1273 | 常规种/亲本 | ⅠA |
| 19 | 竹舟5号 | 常规种/亲本 | ⅠA | 68 | 黄华占 | 常规种/亲本 | ⅠA | 117 | m125 | 常规种/亲本 | ⅠA |
| 20 | 早籼65 | 常规种/亲本 | ⅠA | 69 | 皖籼316 | 常规种/亲本 | ⅠA | 118 | R-725 | 常规种/亲本 | ⅠA |
| 21 | 绿稻24 | 常规种/亲本 | ⅡA | 70 | 早籼14 | 常规种/亲本 | ⅠA | 119 | 南京16 | 常规种/亲本 | ⅠA |
| 22 | 金奉19 | 常规种/亲本 | ⅡA | 71 | 皖稻89 | 常规种/亲本 | ⅠA | 120 | 中香1号 | 常规种/亲本 | ⅠA |
| 23 | 皖稻113 | 常规种/亲本 | ⅠA | 72 | 中籼898 | 常规种/亲本 | ⅠA | 121 | 粤航1号 | 常规种/亲本 | ⅠA |
| 24 | 安选6号 | 常规种/亲本 | ⅠA | 73 | 中籼352 | 常规种/亲本 | ⅠA | 122 | R1846 | 常规种/亲本 | ⅠA |
| 25 | 早籼15 | 常规种/亲本 | ⅠA | 74 | 盐稻8号 | 常规种/亲本 | ⅠA | 123 | N456 | 常规种/亲本 | ⅠA |
| 26 | 皖稻141 | 常规种/亲本 | ⅠA | 75 | 泰国籼 | 常规种/亲本 | ⅡA | 124 | R-11 | 常规种/亲本 | ⅠA |
| 27 | 丰优58 | 常规种/亲本 | ⅠA | 76 | 中香6号 | 常规种/亲本 | ⅠA | 125 | 海南常规稻 | 常规种/亲本 | ⅠA |
| 28 | 皖稻173 | 常规种/亲本 | ⅠA | 77 | 3263 | 常规种/亲本 | ⅠA | 126 | 肖37878 | 常规种/亲本 | ⅠA |
| 29 | W262 | 常规种/亲本 | ⅠA | 78 | 镇籼96 | 常规种/亲本 | ⅠA | 127 | KL90(童) | 常规种/亲本 | ⅠA |
| 30 | 皖稻84 | 常规种/亲本 | ⅠA | 79 | C4115 | 常规种/亲本 | ⅠA | 128 | Liu矮 | 常规种/亲本 | ⅠA |
| 31 | 绿旱1号 | 常规种/亲本 | ⅠA | 80 | NIJR05 | 常规种/亲本 | ⅡA | 129 | 创优2号 | 常规种/亲本 | ⅠA |
| 32 | 滁9507 | 常规种/亲本 | ⅠA | 81 | 武运粳14 | 常规种/亲本 | ⅡA | 130 | IR24(尹) | 常规种/亲本 | ⅠA |
| 33 | 川农1号 | 常规种/亲本 | ⅠA | 82 | 凡7 | 常规种/亲本 | ⅡA | 131 | CO39(尹) | 常规种/亲本 | ⅠA |
| 34 | 协优009 | 常规种/亲本 | ⅠA | 83 | R18 | 常规种/亲本 | ⅡA | 132 | 明86(夏) | 常规种/亲本 | ⅠA |
| 35 | R96-2 | 常规种/亲本 | ⅠA | 84 | C418 | 常规种/亲本 | ⅠA | 133 | 丰华占 | 常规种/亲本 | ⅠA |
| 36 | 丰优188 | 常规种/亲本 | ⅠA | 85 | HP121 | 常规种/亲本 | ⅠA | 134 | 明恢86 | 常规种/亲本 | ⅠA |
| 37 | 中早33 | 常规种/亲本 | ⅠA | 86 | 皖恢9号 | 常规种/亲本 | ⅠA | 135 | 五色黑米 | 常规种/亲本 | ⅠA |
| 38 | 安育早1号 | 常规种/亲本 | ⅠA | 87 | 7NP285 | 常规种/亲本 | ⅡA | 136 | 五色红米 | 常规种/亲本 | ⅠA |
| 39 | 早籼2430 | 常规种/亲本 | ⅡA | 88 | XH022 | 常规种/亲本 | ⅡA | 137 | 红香米 | 常规种/亲本 | ⅠA |
| 40 | 中籼2503 | 常规种/亲本 | ⅠA | 89 | M1148 | 常规种/亲本 | ⅡA | 138 | 红米 | 常规种/亲本 | ⅠA |
| 41 | 天香58 | 常规种/亲本 | ⅠA | 90 | 粤B | 常规种/亲本 | ⅡA | 139 | 红米早籼 | 常规种/亲本 | ⅠA |
| 42 | 天协13 | 常规种/亲本 | ⅠA | 91 | R18选 | 常规种/亲本 | ⅡA | 140 | 镇籼122 | 常规种/亲本 | ⅠA |
| 43 | 晚粳22 | 常规种/亲本 | ⅠA | 92 | 52 | 常规种/亲本 | ⅠB | 141 | 4M92 | 常规种/亲本 | ⅠA |
| 44 | 宁粳3号 | 常规种/亲本 | ⅠA | 93 | 2428 | 常规种/亲本 | ⅠA | 142 | 8019 | 常规种/亲本 | ⅠA |
| 45 | 早籼788 | 常规种/亲本 | ⅠA | 94 | 贵9B | 常规种/亲本 | ⅠA | 143 | 四丰43 | 常规种/亲本 | ⅠA |
| 46 | 川农2号 | 常规种/亲本 | ⅠA | 95 | SR54 | 常规种/亲本 | ⅡA | 144 | 青元矮 | 常规种/亲本 | ⅠA |
| 47 | 糯稻N-2 | 常规种/亲本 | ⅠA | 96 | 中9B | 常规种/亲本 | ⅠA | 145 | 春江06 | 常规种/亲本 | ⅠA |
| 48 | 早籼18 | 常规种/亲本 | ⅠA | 97 | NLjR09 | 常规种/亲本 | ⅠA | 146 | 8077s | 常规种/亲本 | ⅠA |
| 49 | 838 | 常规种/亲本 | ⅠA | 98 | II-32B | 常规种/亲本 | ⅠA | 147 | HL514 | 常规种/亲本 | ⅡA |
| 编号 Number | 品种 Variety | 类型 Type | 类群 Group | 编号 Number | 品种 Variety | 类型 Type | 类群 Group | 编号 Number | 品种 Variety | 类型 Type | 类群 Group |
| 148 | IR26 | 常规种/亲本 | ⅠA | 181 | 扬两优6号 | 两系杂交稻 | ⅠA | 214 | 天优华占 | 三系杂交稻 | ⅠA |
| 149 | 南粳15 | 常规种/亲本 | ⅠA | 182 | 丰两优1号 | 两系杂交稻 | ⅠA | 215 | K优52 | 三系杂交稻 | ⅠA |
| 150 | 紫稻 | 常规种/亲本 | ⅠA | 183 | 广两优76 | 两系杂交稻 | ⅠA | 216 | 丰优126 | 三系杂交稻 | ⅠA |
| 151 | ZH199 | 常规种/亲本 | ⅠA | 184 | 徽两优996 | 两系杂交稻 | ⅠA | 217 | 丰源优272 | 三系杂交稻 | ⅠA |
| 152 | GP15 | 常规种/亲本 | ⅠA | 185 | 新两优香4 | 两系杂交稻 | ⅠA | 218 | 荃香优512 | 三系杂交稻 | ⅠA |
| 153 | IR8 | 常规种/亲本 | ⅠA | 186 | 淮两优3号 | 两系杂交稻 | ⅠA | 219 | 广籼优4号 | 三系杂交稻 | ⅠA |
| 154 | 黑米 | 常规种/亲本 | ⅠA | 187 | 两优036 | 两系杂交稻 | ⅡB | 220 | 科优16 | 三系杂交稻 | ⅠA |
| 155 | IR64 | 常规种/亲本 | ⅡA | 188 | 两优100 | 两系杂交稻 | ⅠA | 221 | 农华优808 | 三系杂交稻 | ⅠA |
| 156 | B5 | 常规种/亲本 | ⅠA | 189 | 两优华6 | 两系杂交稻 | ⅠA | 222 | 冈优1577 | 三系杂交稻 | ⅠA |
| 157 | 五常香 | 常规种/亲本 | ⅠA | 190 | 广两优100 | 两系杂交稻 | ⅠA | 223 | 新优188 | 三系杂交稻 | ⅠA |
| 158 | 两优631 | 两系杂交稻 | ⅠA | 191 | 丰两优3号 | 两系杂交稻 | ⅡA | 224 | 金优88 | 三系杂交稻 | ⅠA |
| 159 | 广两优香66 | 两系杂交稻 | ⅠA | 192 | 新两优98 | 两系杂交稻 | ⅠB | 225 | 中优1671 | 三系杂交稻 | ⅠA |
| 160 | Y两优1号 | 两系杂交稻 | ⅠA | 193 | 安两优821 | 两系杂交稻 | ⅠA | 226 | 协优63 | 三系杂交稻 | ⅠA |
| 161 | Y两优9918 | 两系杂交稻 | ⅠA | 194 | 常两优2号 | 两系杂交稻 | ⅠB | 227 | 80优121 | 三系杂交稻 | ⅠA |
| 162 | 深两优865 | 两系杂交稻 | ⅠA | 195 | 丰两优80 | 两系杂交稻 | ⅠA | 228 | Ⅲ优98 | 三系杂交稻 | ⅠA |
| 163 | 新华两优9号 | 两系杂交稻 | ⅠA | 196 | 中浙优8号 | 三系杂交稻 | ⅠA | 229 | 协优9019 | 三系杂交稻 | ⅠA |
| 164 | 华两优1206 | 两系杂交稻 | ⅠA | 197 | 甬优10号 | 三系杂交稻 | ⅡA | 230 | 协优58 | 三系杂交稻 | ⅠA |
| 165 | C两优608 | 两系杂交稻 | ⅠA | 198 | 春优84 | 三系杂交稻 | ⅡA | 231 | 丰优293 | 三系杂交稻 | ⅡA |
| 166 | 两优363 | 两系杂交稻 | ⅠA | 199 | 浙优18 | 三系杂交稻 | ⅡA | 232 | Ⅱ优107 | 三系杂交稻 | ⅠA |
| 167 | 丰两优晚三 | 两系杂交稻 | ⅠA | 200 | 钱优0508 | 三系杂交稻 | ⅠA | 233 | 庐优855 | 三系杂交稻 | ⅠA |
| 168 | 广两优1128 | 两系杂交稻 | ⅠA | 201 | 扬籼优418 | 三系杂交稻 | ⅠA | 234 | 怀优4号 | 三系杂交稻 | ⅠB |
| 169 | II优98 | 两系杂交稻 | ⅠA | 202 | 甬优538 | 三系杂交稻 | ⅡA | 235 | 新隆优1 | 三系杂交稻 | ⅠA |
| 170 | 科两优889 | 两系杂交稻 | ⅠA | 203 | 科优8377 | 三系杂交稻 | ⅠA | 236 | 丰晚籼优1号 | 三系杂交稻 | ⅠA |
| 171 | 徽两优5号 | 两系杂交稻 | ⅠA | 204 | 川香优2号 | 三系杂交稻 | ⅠA | 237 | 辐优138 | 三系杂交稻 | ⅠA |
| 172 | 隆两优6号 | 两系杂交稻 | ⅠA | 205 | 甬优1540 | 三系杂交稻 | ⅡA | 238 | 天优81 | 三系杂交稻 | ⅠA |
| 173 | 丰两优9号 | 两系杂交稻 | ⅠA | 206 | T优15 | 三系杂交稻 | ⅠA | 239 | 开优8号 | 三系杂交稻 | ⅠA |
| 174 | II优1256 | 两系杂交稻 | ⅠA | 207 | 丰优9号 | 三系杂交稻 | ⅠA | 240 | 中2优1286 | 三系杂交稻 | ⅠB |
| 175 | 深两优862 | 两系杂交稻 | ⅠA | 208 | 浙糯优1号 | 三系杂交稻 | ⅡA | 241 | 新隆粳3号 | 三系杂交稻 | ⅠA |
| 176 | 两优6326 | 两系杂交稻 | ⅠA | 209 | 宜优673 | 三系杂交稻 | ⅠA | 242 | Ⅱ优8号 | 三系杂交稻 | ⅠA |
| 177 | C两优华占 | 两系杂交稻 | ⅠA | 210 | 天优998 | 三系杂交稻 | ⅠA | 243 | 辐优155 | 三系杂交稻 | ⅠA |
| 178 | 丰两优香1号 | 两系杂交稻 | ⅠA | 211 | 五优308 | 三系杂交稻 | ⅠA | 244 | 丰优512 | 三系杂交稻 | ⅡA |
| 179 | 徽两优6号 | 两系杂交稻 | ⅠA | 212 | 嘉禾优555 | 三系杂交稻 | ⅡA | 245 | 辐优136 | 三系杂交稻 | ⅠA |
| 180 | 两优688 | 两系杂交稻 | ⅠA | 213 | 欣荣优华占 | 三系杂交稻 | ⅠA |
1.2 水稻功能性InDel标记位点的筛选
从决定水稻品种特征的性状和特点出发,选择与水稻主要农艺性状密切相关的已知重要功能基因。通过中国水稻数据中心网站(
1.3 InDel位点引物设计
在InDel位点的上、下游各100bp范围内,利用Primer 5软件设计PCR扩增引物,引物对的参数要求:长度最适20bp、最大25bp、最小18bp,退火温度最适59℃、最大62℃、最小57℃,GC含量最适50%、最大80%、最小20%,最大自我互补45%,最大3′自我互补35%,最大引物对互补45%,最大3′引物对互补35%。
1.4 纯度和真实性的试验方法
纯度和真实性的具体试验方法参考国家标准《三系杂交水稻及亲本真实性和品种纯度鉴定DNA分析方法(GB/T20396-2006)》[18]和出入境行业标准《两系水稻品种真实性和纯度鉴定DNA分析法》[19]。DNA的提取采用CTAB法[20,21],在田间种植的品种,选取抽穗期典型单株幼嫩叶片,其余品种进行室内发苗(单株提取,每品种12个单株),用超微量核酸蛋白检测仪测定DNA浓度,用10%的聚丙烯酰胺凝胶电泳(polyacrylamide gel electrophoresis,PAGE)检测DNA质量,-20℃保存。PCR扩增体系为1×PCR缓冲液,2.5mmol/L Mg2+,0.25mmol/L dNTPs,0.2μmol/L上游引物、0.2μmol/L下游引物,1.0U Taq DNA聚合酶,20~40ng DNA模板,总体积10μL。反应程序为94℃ 5min,94℃ 45s,55℃ 45s,72℃ 1min,循环30次,72℃ 5min,4℃保存。
1.5 数据处理
2 结果与分析
2.1 水稻功能性InDel标记位点的筛选
通过网站
表2 InDel标记位点及对应的引物序列
Table 2
| 序号 Number | 基因座位 Gene locus | InDel位点 InDel point | 性状 Character | 基因 Gene | 上游引物 Upstream primer (5′-3′) | 下游引物 Downstream primer (5′-3′) |
|---|---|---|---|---|---|---|
| 1 | LOC_Os01g02890 | vf0101045823 | 穗型 | sui1 | TCTGCCATTGACGGTTACCT | TCAGTCAAAACCACCAGGGA |
| 2 | LOC_Os01g02890 | vf0101045824 | 穗型 | sui1 | TCTGCCATTGACGGTTACCT | TCAGTCAAAACCACCAGGGA |
| 3 | LOC_Os01g02890 | vf0101046394 | 穗型 | sui1 | CCCCCAAAAAAATATTGCAAATGG | CAAAGAAGGGTGGTCTGCTG |
| 4 | LOC_Os01g02890 | vf0101046400 | 穗型 | sui1 | CCCCCAAAAAAATATTGCAAATGG | CAAAGAAGGGTGGTCTGCTG |
| 5 | LOC_Os01g02890 | vf0101046696 | 穗型 | sui1 | CGCAGGTCAAATCGTCGAAT | GTGGACAACATGAAATGGTCCA |
| 6 | LOC_Os01g02890 | vf0101047729 | 穗型 | sui1 | AAGGATTCCTTTTTGTTGATATGTCA | AGAAGGTGCCTGAAGAAATGAATAA |
| 7 | LOC_Os01g08700 | vf0104337406 | 抽穗期 | OsGI | TTCAACCAATCCGGACCTCA | TTTCTCGCCTCTCCTTCCTC |
| 8 | LOC_Os01g08700 | vf0104337480 | 抽穗期 | OsGI | GGAGGAGAGAGAGAGGGAGA | GGAAATAGCGCGGCCACT |
| 9 | LOC_Os01g10110 | vf0105274528 | 每穗实粒数 | Gn1a; OsCKX2 | ATCCTGACCTGCTCTTGCTT | ATAGGCCACCTTGTCCCTTC |
| 10 | LOC_Os01g38530 | vf0121638848 | 抽穗期、千粒重 | OsEF3 | CGAGCTCGCTTAAATCCTTGG | TCTTTCTAGCCTTGTTTCTGCA |
| 11 | LOC_Os01g38530 | vf0121641804 | 抽穗期、千粒重 | OsEF3 | CATCACCTTCCCCCTCTCC | TCCTTCCTTTCCTCGACCTG |
| 12 | LOC_Os01g38530 | vf0121641930 | 抽穗期、千粒重 | OsEF3 | CAGGTCGAGGAAAGGAAGGA | CCTTCGCCTTCCATTCCATG |
| 13 | LOC_Os01g39630 | vf0122357349 | 雌性不育、雄性不育 | RAD51C | ACTTGGGAGGTTGAGGATGG | CAACGTGCCTCATCACTCTG |
| 14 | LOC_Os01g39680 | vf0122381968 | 花粉败育 | Sa; SaM;SaF | GGGATTGAAGATGCGTGCAT | TGGGGTAGACGGGGAGATAA |
| 15 | LOC_Os01g39680 | vf0122381972 | 花粉败育 | Sa; SaM;SaF | GTCATGCTGTTGTTGCCGTA | TGGGGTAGACGGGGAGATAA |
| 16 | LOC_Os01g40630 | vf0122956069 | 株型 | LOG | CGTACGTAATGCAGTGGTCA | ATCGCATTTGCCTTGCCTTC |
| 17 | LOC_Os01g40630 | vf0122956073 | 株型 | LOG | CGTACGTAATGCAGTGGTCA | ATCGCATTTGCCTTGCCTTC |
| 18 | LOC_Os01g40630 | vf0122956997 | 株型 | LOG | GGCCCCAGATGCATTCAAAA | AGATTGGGGGTAGGAGGAGT |
| 19 | LOC_Os01g40630 | vf0122957399 | 株型 | LOG | CCAAAAGGTGGGGGAGAGA | ATCATGATTGCTGGCGAGC |
| 20 | LOC_Os01g47710 | vf0127287637 | 穗型 | DWT1 | TGCAAGATATATTAGAACCCTAGCT | GCTGTACTAGTTAAGTGGCCC |
| 21 | LOC_Os01g62920 | vf0136444446 | 落粒性 | qSH1 | TCAATCTCTCTATAGCCCGCA | GCGACATGGCTTGATGATCA |
| 22 | LOC_Os01g65900 | vf0138261366 | 株高 | OsPH1 | TTTGGGAGTTGCAGGTTGTG | AAGGTCCTGATCGTGTGGAG |
| 23 | LOC_Os01g65900 | vf0138264444 | 株高 | OsPH1 | ACGGAAATGGGAAGGAGAGG | CCACTCGCTATCCCCAACC |
| 24 | LOC_Os01g65900 | vf0138264465 | 株高 | OsPH1 | ACGGAAATGGGAAGGAGAGG | CCACTCGCTATCCCCAACC |
| 25 | LOC_Os01g66100 | vf0138384219 | 株高 | sd1; GA20ox-2 | GGAACGAACAGAAGCCGATT | AGCGGTAGGGTCCAAAATTG |
| 26 | LOC_Os01g70220 | vf0140362882 | 抽穗期 | SDG714 | GGGAGTAGGAGCAGAGCAAA | TGCACTGCCAAACTTATGCA |
| 27 | LOC_Os01g72090 | vf0141823973 | 抽穗期 | Se13; OsHY2 | CGAAGCTGACGAACTTGTGG | ACACAACTACTACTTGCCACTG |
| 28 | LOC_Os01g72090 | vf0141824002 | 抽穗期 | Se13; OsHY2 | CGAAGCTGACGAACTTGTGG | GCAGGGACAGATGTGGCTAA |
| 29 | LOC_Os02g05840 | vf0202882064 | 叶角度、抽穗期 | LC2; OsVIL3 | GTGGATCCATGGCGAATTGG | GAAGAGGAGGGGAGAGTCCA |
| 30 | LOC_Os02g07430 | vf0203833298 | 子粒形状 | OsMADS29 | CCAGTTCAGTAGTTCACACACC | TCAATTGTTCATCGTTCTGGACA |
| 31 | LOC_Os02g10900 | vf0205785307 | 叶色 | RLS1 | GGCGCCATCAGGTCTATACT | TAGTTGCCTCTGTGGAAGCT |
| 32 | LOC_Os02g15950 | vf0209042087 | 穗型 | EP3; LP | TGAGCATAAGAAGCTGAAAAGAAA | GGAGCTGAGAGGGAAAGAGG |
| 序号 Number | 基因座位 Gene locus | InDel位点 InDel point | 性状 Character | 基因 Gene | 上游引物 Upstream primer (5′-3′) | 下游引物 Downstream primer (5′-3′) |
| 33 | LOC_Os02g15950 | vf0209042088 | 穗型 | EP3; LP | TGAGCATAAGAAGCTGAAAAGAAA | GGAGCTGAGAGGGAAAGAGG |
| 34 | LOC_Os02g17380 | vf0209993979 | 育性恢复基因 | Rf2; Rfx | CCACAGATCGGTGAAGGACT | ATGGGAGAGAGGAGGAAAGC |
| 35 | LOC_Os02g36974 | vf0222330733 | 株高 | GID2 | ACTGATGAAGTCCGAGCATCA | ACAGAACAAACTGGTAGGCCT |
| 36 | LOC_Os02g39710 | vf0223985186 | 抽穗期 | OsCOL4 | TTCTGAGGAAGGACGTACGC | TTATTCATGTCACACGGGGC |
| 37 | LOC_Os02g49230 | vf0230092882 | 抽穗期 | DTH2 | GGCAAGCATGATCACTGGAG | TGAGCTTCTCGCATGTTTGC |
| 38 | LOC_Os02g49230 | vf0230093556 | 抽穗期 | DTH2 | GTAAATCTAGCGCGAGGTCG | GTCGCGGAGTCAGAGTCG |
| 39 | LOC_Os02g50240 | vf0230668947 | 株高、抽穗期、 子粒灌浆程度 | OsGS1; GS1;OsGS1;1 ; OsGLN1;1 ; OsGS28 | TAACGCAAAAGCCACGGC | CGGTACTTGTCCCATCCTGT |
| 40 | LOC_Os02g50240 | vf0230669103 | 株高、抽穗期、 子粒灌浆程度 | OsGS1; GS1;OsGS1;1 ; OsGLN1;1 ; OsGS28 | TACACAAGAGCACCCAAACG | TGGTTGCATGCTACCACTAC |
| 41 | LOC_Os02g52710 | vf0232242495 | 种子萌发 | RAmy1A | CCAGTACAATCGAACCAAGCA | CCACGAAGTACTTCCTCCGT |
| 42 | LOC_Os02g53690 | vf0232835334 | 抽穗期 | OsGRF1; rhd1 | AAGAAGTGGCGGAGAGGTTT | GCCGTACGCCATTGATCTTT |
| 43 | LOC_Os02g56100 | vf0234327302 | 叶色 | RNRL2 | AGCCATATAATTATATGAGCAAAATCCA | AGACGATACTACCTCCATCCTAAAA |
| 44 | LOC_Os03g02160 | vf0300718538 | 抽穗期 | Ehd4 | GAAGCAACTGTCACCCATGG | TACCTGCTCAACCAATCCCC |
| 45 | LOC_Os03g07510 | vf0303822183 | 粒型、千粒重 | PGL1 | TGAGAAGGAGAAGGAGCACG | CCGTGAAATTCCGGTGGATT |
| 46 | LOC_Os03g07530 | vf0303833269 | 每穗粒数、子粒大小 | OsFBK12 | GGGGCAGAAGCATTAGAAGC | CGAGAAAAATCCCCACCACC |
| 47 | LOC_Os03g12660 | vf0306742028 | 叶角度 | OsDWARF4; CYP90B2 | GAAGGTCATCAAGGACGTGC | TAACACCGGCAGGATCTTCC |
| 48 | LOC_Os03g13370 | vf0307210547 | 株高、穗长、 子粒大小 | OsAPC6 | CAACCGTGCATCCTACCAAG | GGTGCAGAGGTAGCAGATGT |
| 49 | LOC_Os03g22510 | vf0312928893 | 株高 | OsSIN | CTAGTCCGGCCGTACATGAA | AGTTTCTTGTGTGACGCGTG |
| 50 | LOC_Os03g44500 | vf0325040498 | 粒型 | qGL3 | TCAATTCGGAGCCAAACAAGA | GGTGGCGAATGGAGTTTGAT |
| 51 | LOC_Os03g57940 | vf0332993034 | 抽穗期 | CKI; EL1; Hd16 | ATCGGGTGATGGAGATGCTC | CTGAGGCATTCATCGCCATC |
| 52 | LOC_Os04g46470 | vf0427385522 | 株高 | OsCCD7; htd1; sd-t; dit1 | CCATGATCTTAACCCATTCGACA | TGGCTCGCATTAAGTGATGC |
| 53 | LOC_Os04g52479 | vf0431018471 | 叶型 | Nal1; qFLW4 | GTGTAGTTGGTGTTCCTCGC | GAGAGTGCTGGGAATCTGGA |
| 54 | LOC_Os04g52479 | vf0431018961 | 叶型 | Nal1; qFLW4 | GGTGGAGGACAGGTGGTATC | CAAACAACTCAGCCGCCAT |
| 55 | LOC_Os04g52479 | vf0431019024 | 叶型 | Nal1; qFLW4 | GGTGGTATCTTGTGCCGTCT | AAACAAACAACTCAGCCGCC |
| 56 | LOC_Os04g55560 | vf0432886736 | 落粒性 | SHAT1 | ACTTGCATAGCCCAACAAGG | GTCTTGGACTCTTGGCACTG |
| 57 | LOC_Os05g05240 | vf0502572700 | 粒型、千粒重 | OsPPKL2 | TGACGCTTCAGTGTTCAGTG | GTGTAGATGAGAGGGACCGG |
| 58 | LOC_Os05g06660 | vf0503443553 | 千粒重、结实率、 粒型 | GS5 | CATTGACGAGCTGAAGCACA | GCGCAACAGTGAGCTATAGC |
| 59 | LOC_Os05g09520 | vf0505366461 | 粒型 | qSW5/ GW5 | GCCCGAACTACATGTCCAAC | CTCCACCACCACCACCTC |
| 60 | LOC_Os05g50270 | vf0528755831 | 叶型、茎秆节数 | NL1 | GATGCGGCTTCATCACCG | CGGTGGGACGACGTTGAG |
| 61 | LOC_Os06g03710 | vf0601465089 | 株高 | DLT; OsGRAS-32;D62 | GTACAGCGGCTGGTCCAG | CATGATCGCGAGGATGTTCG |
| 62 | LOC_Os06g03710 | vf0601466875 | 株高 | DLT; OsGRAS-32;D62 | GTGCCAAGAAGAGACCTCCT | AGCCTTAGCCAGATACCACA |
| 63 | LOC_Os06g03710 | vf0601467535 | 株高 | DLT; OsGRAS-32;D62 | GGAGATGGAGATGCAGCCTA | TTCTTCCCTTCCCTTCCACC |
| 64 | LOC_Os06g03710 | vf0601467561 | 株高 | DLT; OsGRAS-32;D62 | TGTTGCCTCACCATTACCAC | TTCTTCCCTTCCCTTCCACC |
| 65 | LOC_Os06g04200 | vf0601764669 | 淀粉 | wx; qGC-6; Wx-mq; Wx-op | CAAATAGCCACCCACACCAC | ACAACAGAACAACACAAGCAGA |
| 66 | LOC_Os06g04200 | vf0601764698 | 淀粉 | wx; qGC-6; Wx-mq; Wx-op | CACCCCCTCTCTCACCATTC | ACAACAGAACAACACAAGCAGA |
| 67 | LOC_Os06g06050 | vf0602779752 | 株型、株高 | D3 | TATCACTTCGCTGTGTGGCT | CCATGGGCGACGTCTACTC |
| 68 | LOC_Os06g06050 | vf0602779803 | 株型、株高 | D3 | CACTCGCTTCACCCCAAATC | CGTCAGGAAGCTCAGGATGT |
| 69 | LOC_Os06g06050 | vf0602779807 | 株型、株高 | D3 | CACTCGCTTCACCCCAAATC | CGTCAGGAAGCTCAGGATGT |
| 70 | LOC_Os06g06050 | vf0602779824 | 株型、株高 | D3 | GAGTAGACGTCGCCCATGG | CGTCAGGAAGCTCAGGATGT |
| 71 | LOC_Os06g06050 | vf0602780108 | 株型、株高 | D3 | CTGGAACACCTCGACCTCTC | GATGAAGGCGTTCTGCTCG |
| 72 | LOC_Os06g06560 | vf0603085679 | 糊化温度 | OsSSI; SSS1 | GTCGCCATGATCCCCCCT | CTCAGCCCACTCCTCTCTCT |
| 73 | LOC_Os06g06560 | vf0603085750 | 糊化温度 | OsSSI; SSS1 | AGAGAGAGGAGTGGGCTGAG | AGCGAACCAGCTCATCCAC |
| 74 | LOC_Os06g16370 | vf0609336003 | 抽穗期 | Hd1 | GACGAGGAGGTGGACTCTTG | ACATGCCGTTGTTGCTGC |
| 75 | LOC_Os06g16370 | vf0609336027 | 抽穗期 | Hd1 | GACGAGGAGGTGGACTCTTG | ACATGCCGTTGTTGCTGC |
| 76 | LOC_Os06g16370 | vf0609336033 | 抽穗期 | Hd1 | GACGAGGAGGTGGACTCTTG | GATGCGGTTGTCGTAGTACG |
| 77 | LOC_Os06g40780 | vf0624311155 | 株高 | OsPNH1 | GACATTCCATCCAAGGGTGC | AGAGAGGGCAGTGAACACTC |
| 78 | LOC_Os06g40780 | vf0624311160 | 株型 | MOC1 | GACATTCCATCCAAGGGTGC | AGAGAGGGCAGTGAACACTC |
| 79 | LOC_Os06g44034 | vf0626555168 | 株高、分蘖数 | sdt; OsmiR156h | CCATTTGCTGCTGTTCCCTT | TGCAGAGACTTGCAGCTAGT |
| 80 | LOC_Os06g44100 | vf0626592286 | 株高、分蘖数 | sdt; OsmiR156h | GCTCGACGCAGAGAGACAT | GTTCACGACCACGCCGAC |
| 81 | LOC_Os07g11020 | vf0706067072 | 株高、分蘖数 | OsTRXh1 | GCATCCTGATGATTGTTCCCA | TCTTTCAGCACATGGTTGGC |
| 82 | LOC_Os07g11020 | vf0706068130 | 种皮、果皮红 | Rc; qSD7-1;qPC7 | AGGTGTCCATCATCGAGAGC | GAGCTCCTGCATCGCCTG |
| 83 | LOC_Os07g41200 | vf0724668239 | 粒型 | GL7; GW7 | CTCACGCACATCCAACTGC | CACATCTCATCTCACGCGTC |
| 84 | LOC_Os07g41200 | vf0724668280 | 粒型 | GL7; GW7 | GAAAGCCAAGGAGCAAGCAG | CTCTCCCTCTCCTCACGACA |
| 85 | LOC_Os07g41370 | vf0724787521 | 穗型 | OsMADS18 | CCTCCCCCCATTTCCATCTT | ATCTTGTTCTCGATCCGCCG |
| 86 | LOC_Os07g41370 | vf0724787522 | 穗型 | OsMADS18 | CCTCCCCCCATTTCCATCTT | ATCTTGTTCTCGATCCGCCG |
| 序号 Number | 基因座位 Gene locus | InDel位点 InDel point | 性状 Character | 基因 Gene | 上游引物 Upstream primer (5′-3′) | 下游引物 Downstream primer (5′-3′) |
| 87 | LOC_Os07g41370 | vf0724787544 | 穗型 | OsMADS18 | CCTCCCCCCATTTCCATCTT | AGAAGGTCACCTGCCTGTTT |
| 88 | LOC_Os07g49460 | vf0729615794 | 抽穗期 | DTH7; Ghd7.1; OsPRR37 | CCGCCCTCCCCAATATCTAG | AAGTTACCTGCGGTTGGTTG |
| 89 | LOC_Os07g49460 | vf0729626365 | 抽穗期 | DTH7; Ghd7.1; OsPRR37 | CAAACTCAGATGCTGCACCA | GCTGTGCAGGATGAAATGCT |
| 90 | LOC_Os08g07740 | vf0804332913 | 子粒产量、 株高和抽穗期 | Ghd8 | GTCTAAACCATTGCACGCCA | TGATGGAGTTCGAGGGCATC |
| 91 | LOC_Os08g07740 | vf0804332925 | 子粒产量、 株高和抽穗期 | Ghd8 | GTCTAAACCATTGCACGCCA | TGATGGAGTTCGAGGGCATC |
| 92 | LOC_Os08g07740 | vf0804334115 | 子粒产量、 株高和抽穗期 | Ghd8 | ACCTATGCAAAGTGAGTAGAGATT | ATGCGCTGCACACATGTAAT |
| 93 | LOC_Os08g07740 | vf0804334118 | 子粒产量、 株高和抽穗期 | Ghd8 | ACCTATGCAAAGTGAGTAGAGATT | ATGCGCTGCACACATGTAAT |
| 94 | LOC_Os08g07740 | vf0804334120 | 子粒产量、 株高和抽穗期 | Ghd8 | ACCTATGCAAAGTGAGTAGAGATT | ATGCGCTGCACACATGTAAT |
| 95 | LOC_Os08g07740 | vf0804334201 | 子粒产量、 株高和抽穗期 | Ghd8 | AACTTGGTTGTTTGCATTACATGTG | TGATCATCACCTAAGATTTTTTAGTCTT |
| 96 | LOC_Os08g08840 | vf0805138735 | 淀粉合成 | OsGPT | CTTGGGGCTCTCCTACGATC | CCGCGGAAACAACAACAGAA |
| 97 | LOC_Os08g30910 | vf0819086011 | 抽穗期 | SDG710 | CAGGCCTCTGCATAGCTGAT | CTGAGCAATCGCAACCATGA |
| 98 | LOC_Os08g31470 | vf0819461558 | 株型 | PAY1 | CAGGTACCGTTCTCCCCG | GCGAGCTTCTTGGATCTGTG |
| 99 | LOC_Os08g31470 | vf0819461562 | 株型 | PAY1 | CAGGTACCGTTCTCCCCG | GCGAGCTTCTTGGATCTGTG |
| 100 | LOC_Os08g31470 | vf0819461571 | 株型 | PAY1 | CAGGTACCGTTCTCCCCG | GCGAGCTTCTTGGATCTGTG |
| 101 | LOC_Os08g31470 | vf0819462009 | 株型 | PAY1 | GCTCTTCTCGTGCTTGGATG | CCAGCCGAAGCAGAATCAAT |
| 102 | LOC_Os08g41940 | vf0826498477 | 千粒重 | qGW8; OsSPL16 | CACGGAATCGAGAGTGAGGA | CGGCATCTTGAGATCCCACT |
| 103 | LOC_Os08g41940 | vf0826502759 | 千粒重 | qGW8; OsSPL16 | AGCCACTTCTGAAGACGGTA | GAGCACTTGTGTCAACCCAC |
| 104 | LOC_Os09g02650 | vf0901157494 | 茎秆强度、株高 | BC12 | GCATCAGTAGCAGTAGCAGC | CGGAGCCAATAAGGAGGATTC |
| 105 | LOC_Os09g02650 | vf0901157501 | 茎秆强度、株高 | BC12 | GCATCAGTAGCAGTAGCAGC | CGGAGCCAATAAGGAGGATTC |
| 106 | LOC_Os09g27620 | vf0916785562 | 不育 | tms9-1 | CCTGTGCTTCGCGATCAAC | GTGTAGCAGGTGGCCTCTG |
| 107 | LOC_Os09g27620 | vf0916785573 | 不育 | tms9-1 | CCTGTGCTTCGCGATCAAC | GTGTAGCAGGTGGCCTCTG |
| 108 | LOC_Os09g35980 | vf0920731230 | 分蘖角度 | TAC1 | CATCACTGGCGAGCGAATAG | CCATGCATATCGTCGACAGC |
| 109 | LOC_Os10g28330 | vf1014668336 | 抽穗期 | Ehd2 | ACTGGTCATTGAGTTGCTGC | GCACATTGACACCTGCAGAG |
| 110 | LOC_Os10g28330 | vf1014668338 | 抽穗期 | Ehd2 | ACTGGTCATTGAGTTGCTGC | GCACATTGACACCTGCAGAG |
| 111 | LOC_Os11g05850 | vf1102731154 | 粒型、千粒重 | CycT1;3 | CCCACAAGTAGCTGCAGTTG | TGCCATTGACCCAACCTAGT |
| 112 | LOC_Os11g12740 | vf1107189229 | 穗型 | SP1 | AACTACTACCTTTTGACTTGACCT | TGGATGTATATGAGTCCCCACC |
| 113 | LOC_Os11g12740 | vf1107189401 | 穗型 | SP1 | ACATCCACCCTTACTAATATTTTTCCA | GAGCAGCAGGAGGAGAAGG |
| 114 | LOC_Os11g12740 | vf1107189651 | 穗型 | SP1 | CGAGGAGCCAGTAGAAGAGG | TTCTACCTCAGCTCCCTCCT |
| 115 | LOC_Os11g12740 | vf1107189878 | 穗型 | SP1 | GTGAACATCTCGGACACGC | CCGTCACCTTCTCCATGGT |
| 116 | LOC_Os11g12740 | vf1107190696 | 穗型 | SP1 | TTTGTTGATGCGGTGGACAG | GGCGGTAACCAAGAGGAAAC |
| 117 | LOC_Os11g12740 | vf1107192768 | 穗型 | SP1 | GCGTTGAAGTAGCTCGACAG | CCTCAAGCCCAACATCATCG |
| 118 | LOC_Os11g29840 | vf1116855382 | 株型 | LA1 | AGCGGCCTTCTCACCATC | GTCCTCGACGGTGAAGCC |
| 119 | LOC_Os11g29840 | vf1116855390 | 株型 | LA1 | AGCGGCCTTCTCACCATC | GTCCTCGACGGTGAAGCC |
| 120 | LOC_Os11g29840 | vf1116857535 | 株型 | LA1 | CACAGGAAAGTCTACCCCGA | CCTCATGGGATGGTCCTTCC |
| 121 | LOC_Os11g29840 | vf1116857536 | 株型 | LA1 | CACAGGAAAGTCTACCCCGA | CCTCATGGGATGGTCCTTCC |
| 122 | LOC_Os11g29840 | vf1116857537 | 株型 | LA1 | CACAGGAAAGTCTACCCCGA | CCTCATGGGATGGTCCTTCC |
| 123 | LOC_Os12g36030 | vf1222017077 | 不育 | pms3; p/tms12-1; IncRNA; LDM | GTTCATGTTGCTTCCTAACCGA | AGGCTACGTACACTGCACAA |
| 124 | LOC_Os12g36890 | vf1222573212 | 叶型、穗型 | OsCD1 | GGTGAATATCGTCCCGGAGA | CCGAGTTCGTGCACTACAC |
"↑" Indicate the difference locus, the same below
“↑”表示差异位点,下同
2.2 InDel标记在杂交水稻种子纯度鉴定中的应用
选用SSR引物RM7120(来源于SN/T 3402-2012),上游引物序列为5′-TGCCCAAAATATATGAAACC-3′,下游引物序列为5′-TTTTCTTGTTGAATGGGAAC-3′;选用InDel标记引物vf0121641804,上游引物序列为CATCACCTTCCCCCTCTCC,下游引物序列为TCCTTCCTTTCCTCGACCTG。先用SSR引物RM7120对样品两优688进行扩增,共扩增192个单株,检出9株生物学混杂,纯度为95.3%;再利用筛选出的InDel标记引物vf0121641804对上述品种相同单株进行PCR扩增分析,共扩增192个单株,检出11株生物学混杂(图1),纯度为94.3%。根据标准SN/T 3402-2012结果判读总杂株数>4%视为纯度不达标,因此通过两种方法的检测均说明该品种种子纯度不达标,而且InDel标记检测出来的差异位点除了9个与SSR检测结果相同以外,还多检测出了2个差异位点,说明InDel可以用于品种的纯度检测。
图1
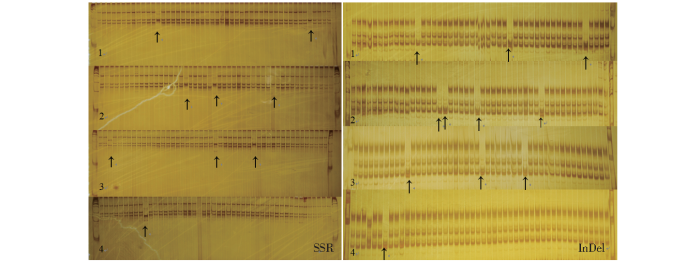
图1
利用SSR标记RM7120和InDel标记vf0121641804检测水稻品种两优688的纯度
Fig.1
Detection of furification of Liangyou 688 rice variety by SSR marker RM7120 and InDel marker vf0121641804
2.3 功能性InDel标记在水稻品种真实性上的应用
首先用48对SSR引物进行扩增(来源于SN/T 3402-2012),20粒水稻种子混样提取样品DNA,每个样品做2个平行,如图2中SSR所示,共4张图,每张图12个标记,每个标记4个单株,前2个单株为样品A,后2个单株为样品B。再利用筛选出的InDel标记中的24对引物,对上述样品进行单株扩增,每个标记4个单株,如图2中InDel所示,共4张图,每张图6个标记,每个标记8个单株,前4个单株为样品A,后4个单株为样品B。根据样品间电泳谱带的异同,判定受检品种的真实性。SSR标记检测结果显示,样品A与样品B间检出12个位点差异,品种间相似度为75%,品种间相似度<90%判定样品A与样品B为不同品种;InDel标记检测结果显示,样品A与样品B之间检出12个位点差异,品种间相似度为50%,品种间相似度<90%判定样品A与样品B为不同品种,InDel检测结果与SSR检测结果完全一致,说明水稻功能性InDel标记完全可用于水稻品种真实性鉴定。
图2
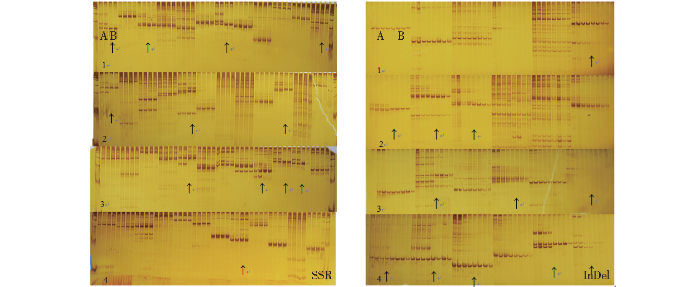
图2
利用SSR标记和InDel标记检测水稻品种的真实性
Fig.2
Detection of authenticity of rice varieties by SSR and InDel markers
2.4 功能性InDel标记在水稻遗传多样性上的应用
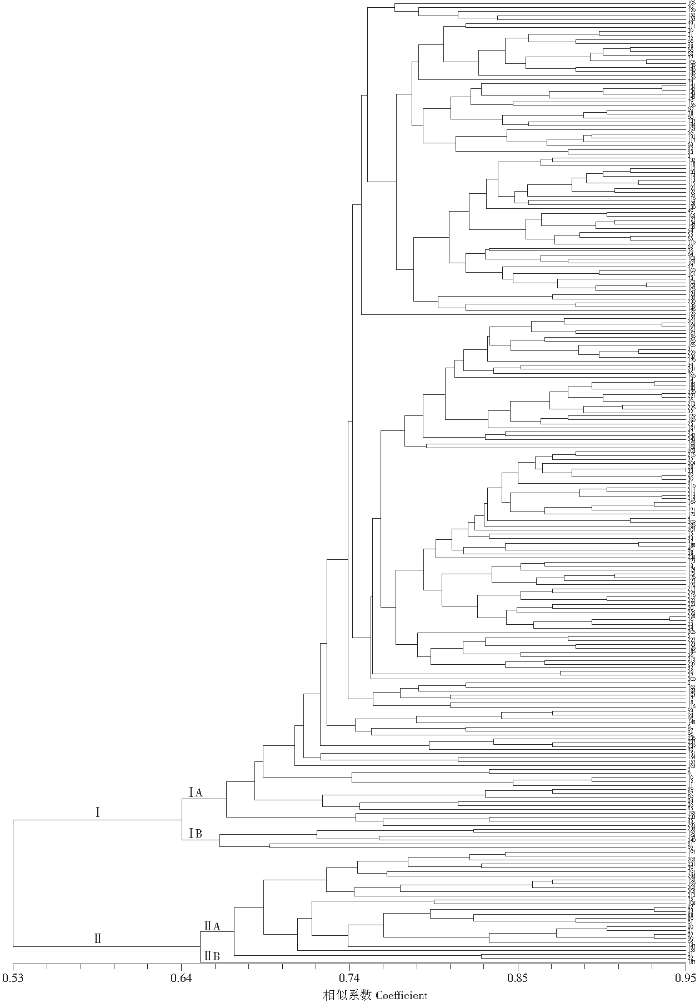
全部124个InDel标记在245个品种间均检测到多态性,检测效率达100%。为明确245个水稻品种的遗传组成和遗传多态性,利用NTSYS对供试水稻品种进行聚类分析,结果(图3)表明,品种间遗传相似系数为0.53~0.95,遗传变异较小,表明供试水稻品种遗传相似性较高,遗传基础比较狭窄。以相似系数0.53为阈值,245个水稻品种分为2个类群(Ⅰ和Ⅱ)。类群Ⅰ包括215个品种,以杂交种为主;类群Ⅱ包括30个品种,以常规种为主。类群Ⅰ在遗传相似系数为0.64处可分为亚群ⅠA和ⅠB,亚群ⅠB包括6个品种,主要是两系杂交种,亚群ⅠA包含209个品种;类群Ⅱ在遗传相似系数为0.65处分为亚群ⅡA和ⅡB。亚群ⅡB只有1个品种两优036,亚群ⅡA包含29个品种。聚类分析可以将这245个品种按照遗传距离的远近分成不同类群,群体结构分析表明这245个品种存在明显的群体结构,能精确区分待测品种的基因型以及品种间的遗传差异。
图3
3 讨论
水稻是世界重要的粮食作物之一,同时也是基因组学研究的模式植物。选育优良品种是保证水稻增产的物质基础,因此品种保护权的维护很关键。随着分子标记的种类和数目的不断增加,分子标记的应用领域也在不断扩大[24,25]。目前分子标记技术除了用于水稻的基因定位以外,还广泛用在小麦[26]、玉米[27]、棉花[28]以及一些蔬菜花卉的基因定位,同时也用于这些作物的分子育种以及遗传关系分析。SSR标记的开发已经成熟,在分子生物学上的应用也比较多[29]。与SSR标记相比,InDel标记是基于基因测序基础上的新型标记[30,31],现代测序技术的发展以及基因组数据信息的公布为InDel标记的开发提供了很好的基础。从试验结果上来看,InDel标记的扩增效果要明显好于SSR标记,其稳定性高,扩增产物的带型简单,分离效果好,用到基因诊断和遗传分析上可以大大提高其分辨率、准确性和稳定性。由于我国是水稻种植大国,水稻品种繁多,混杂现象严重,因此,鉴别供试材料的纯度和真实性是育种单位面临的一个主要问题。通过室内试验的方法鉴别之后,有必要作进一步的田间表型鉴定,才能最终确定是否为同一品种。
本试验中用到的48对SSR核心引物,是参照标准GB/T20396-2006推荐的。所以用它来作为试验的对照具有可行性。试验结果表明,筛选出的InDel引物完全可以用在水稻品种纯度和真实性的鉴定上,而且其中24对核心InDel引物即可检测水稻品种的真实性,判断品种间的亲缘关系,比SSR的48对标准核心引物数量减少了一半,可以有效控制试验成本,操作上更加简便快捷,大大提高了效率。在水稻品种的纯度检测上由于扩增出来的单条带在判读杂交种上会有一些干扰,需要进一步改进优化。本试验收集的长江中下游的245个水稻品种之间的亲缘关系较近,遗传基础狭窄,原因可能是长期的人工选择和育种实践导致的,InDel可以有效检测不同品种间遗传变异,说明InDel检测方法可行,结果可靠。
4 结论
利用245个水稻品种,成功筛选出124个功能性InDel位点,利用这些位点不但可以有效地检测水稻品种纯度和真实性,还可以分析水稻品种的遗传多样性,为今后利用InDel标记及其他分子标记应用于水稻的种性鉴定提供了新的思路和方法。
参考文献
水稻条纹叶枯病的抗性与籼粳分化的相关性
DOI:10.3969/j.issn.10017216.2013.04.014
Magsci
[本文引用: 1]

利用国内外的119份地方水稻品种资源材料通过InDel分子指数法分析水稻条纹叶枯病的抗性与籼粳分化的关系。在119份水稻品种中48份典型籼稻,其中47份抗水稻条纹叶枯病;7份籼稻和1份偏籼的水稻品种,也都抗条纹叶枯病;2份中间型的水稻品种,不抗条纹叶枯病;2份粳型的水稻品种,抗条纹叶枯病;59份典型粳稻品种,都不抗水稻条纹叶枯病。相关性分析表明籼型基因频率与水稻条纹叶枯病发病率呈极显著负相关。这些结果表明携带籼型基因频率越高的水稻材料,对水稻条纹叶枯病的抗性越强,而典型粳稻都表现为感病,推测水稻条纹枯病抗病基因可能起源于籼稻。
中国作物分子育种现状与发展前景
DOI:10.3724/SP.J.1006.2010.01425
Magsci
[本文引用: 1]
近年来,随着基因组测序等多种技术实现突破,基因组学、表型组学等多门“组学”及生物信息学得到迅猛发展,作物育种理论和技术也发生了重大变革。以分子标记育种、转基因育种、分子设计育种为代表的现代作物分子育种技术逐渐成为了全世界作物育种的主流,在我国也正在成为作物遗传改良的重要手段。本文在界定分子育种的基础上,简要分析了中国作物分子育种研究现状和面临的问题,探讨了未来我国作物分子育种的发展策略。
Microsatellite marker development,mapping,and applications in rice genetics and breeding
籼粳稻基因组295个InDel标记的开发
DOI:10.3724/SP.J.1006.2016.00932
Magsci
[本文引用: 1]
<p>插入/缺失(InDel)分子标记具有使用简单,结果清晰可靠的优点。本研究<span>通过比对粳稻品种日本晴和籼稻品种</span><span><span>93-11的基因组序列</span></span>,在全基因组范围内设计了634对InDel候选标记,通过PCR检测比较2种粳稻(日本晴和台中65)和2种籼稻(93-11和黄华占)的多态性,发现295对标记在2种籼稻间及2种粳稻间均带型一致,而在籼、粳亚种间有多态性,因此这套295对标记可以在涉及籼粳亚种的基因定位和分子育种中应用。</p>
利用InDel标记鉴定浙优系列杂交稻籼粳属性和预测杂种优势
DOI:10.3864/j.issn.0578-1752.2014.07.001
Magsci
[本文引用: 1]
【目的】准确鉴定水稻材料的籼粳属性及利用遗传距离预测杂种优势,为开展水稻超高产育种和籼粳亚种间杂种优势利用提供基础。【方法】利用19对籼粳稻特异插入/缺失(Insertion/Deletion,InDel)引物,对12个浙优系列杂交稻及其双亲的籼粳属性进行了InDel分子标记鉴定,根据被检测水稻样品在多个InDel 位点上的籼型或粳型基因频率,参考卢宝荣的方法,将供试样品分别判定为“籼稻”、“偏籼”、“中间偏籼”、“中间偏粳”、“偏粳”和“粳稻”。采用Nei的方法求算13个亲本间(1个不育系和12个恢复系)的InDel遗传距离,用UPGMA法进行遗传相似性聚类,用SPSS 17.0统计分析软件对InDel条带赋值进行主成分分析, 依据第一和第二主成分的特征向量的平均分量值作平面散点图。统计杂种F1稻谷产量、每穗总粒数、每穴有效穗、结实率、千粒重及单穗重各产量性状的对照优势,以此分析InDel遗传距离与杂种优势的相关性。【结果】(1)参试材料籼粳属性的判别:不育系浙04A被鉴定为“粳稻”,8个恢复系被判定为“籼稻”或“偏籼”,由其所配组的8个杂交组合被判定在“中间偏籼”到“偏粳”之间,证实了这8个组合为典型的籼粳交组合;另外4份恢复系被判定为“偏粳”,所配组的4个杂交组合被判定为“粳稻”。(2)参试材料的聚类分析:当GS 为0.350时,35份试验材料被分为“粳稻”和“籼稻”2个主群,GS为0.638时,粳稻主群又被划分为“粳稻/偏粳”和“中间偏粳”2个亚群。其中,粳稻/偏粳亚群包括不育系浙04A、4个粳粳交恢复系及粳粳交杂种F1、3个粳稻对照种和粳稻秀水09;中间偏粳亚群包括8个籼粳交杂种F1。籼稻主群则包括8个籼粳交组合的恢复系、3个籼稻对照种和籼杂组合汕优63。(3)InDel遗传距离与杂种优势的相关性:在以粳粳交、籼粳交组合整体作为分析对象时,InDel遗传距离与稻谷产量、每穗总粒数、单穗重呈极显著正相关,与结实率呈显著负相关;仅以籼粳交组合为研究对象时,InDel遗传距离仅与单穗重和千粒重呈显著正相关。【结论】供试的12个浙优系列中的8个组合被证实为典型的粳不/籼恢型籼粳交组合,这些组合的双亲间具有较远的遗传距离;InDel遗传距离在不同类型品种间具有较好的杂种优势预测能力,可用于单穗重的优势预测,即随着InDel遗传距离的扩大,杂种优势主要体现在单穗重的增加上。
InDel标记鉴定水稻籼粳属性及预测杂种优势
利用21对特异插入/缺失(Insertion/Deletion,InDel)引物,对自主选育的浙粳4A与22个恢复系及其组合进行水稻籼粳属性分析。根据所配组合的产量性状表现,分析亲本的InDel遗传距离与杂种优势的相关性,探讨利用InDel标记遗传距离预测杂种优势的可行性。以供试材料在InDel位点上的多态性为原始数据,通过NTSYS聚类分析进行籼粳属性划分,结果与王明军等的方法所得结果基本一致。结果表明,InDel遗传距离与每穗总粒数、每穗实粒数、单株产量呈极显著正相关,相关系数分别为0627**,0602**和0712**;与单株有效穗数呈显著正相关,相关系数为0426*;与结实率、千粒重的相关性不显著,相关系数分别为0217和0004。表明InDel标记可用于水稻籼粳属性鉴定及杂种优势预测。
单核苷酸多态性的检测及应用
单核苷酸多态性(single nucleotide polymorphisms, SNPs)是近年来发展起来的一种高效便捷的分子标记。它是由单个碱基的转换、颠换、插入或缺失引起的点突变,使得群体之间和个体之间产生了差异。最初SNPs主要运用在与人体重要疾病的关联性研究中,随着检测技术不断提高以及多种生物SNP数据库的不断完善,单核苷酸多态性已经成为开展生物遗传进化及性状关联性分析等领域研究的重要工具。综合介绍了单核苷酸多态性的特点及主要检测方法,并简要概述了SNPs的应用领域和前景。
Efficient indica and japonica rice identification based on the InDel molecular method:Its implication in rice breeding and evolutionary research
Development of a research platform for dissecting phenotype-genotype associations in rice (Oryza SPP.)
分子标记技术的两种新分类思路及目标分子标记技术的提出
<p>摘要:本文在分子标记技术的传统分类基础上,提出了分子标记技术的两种新分类思路,结合有关文献对第二种分类思路II所分的四大分子标记技术类型进行了各自的概念界定,并着重介绍了目标分子标记技术产生的理论与技术背景,最后列出了目标分子标记技术的代表种类及相关信息。</p>
Development,validation and genetic analysis of a large soybean SNP genotyping array
Data mining for simple sequence repeats in expressed sequence tags from barley,maize,rice,sorghum and wheat
InDel标记的研究和应用进展
DOI:10.17520/biods.2015205
Magsci
[本文引用: 1]
<p>InDel是指在近缘种或同一物种不同个体之间基因组同一位点的序列发生不同大小核苷酸片段的插入或缺失(insertion-deletion), 是同源序列比对产生空位(gap)的现象。InDel在基因组中分布广泛、密度大、数目众多。InDel多态性分子标记是基于插入/缺失位点两侧的序列设计特异引物进行PCR扩增的标记, 其本质仍属于长度多态性标记, 可利用便捷的电泳平台进行分型。InDel标记准确性高、稳定性好, 避免了由于特异性和复杂性导致的后续分析模糊。此外, InDel标记能扩增混合DNA样品和高度降解的微量DNA样品, 并进行有效分型。InDel标记目前已开始应用于动植物群体遗传分析、分子辅助育种以及人类法医遗传学、医学诊断等领域。随着位于功能基因上InDel标记的开发, 结合染色体步移和基因精细定位, 可将这些标记应用于相关物种经济性状的功能基因的筛选, 有利于优良基因的进一步开发和利用。</p>


